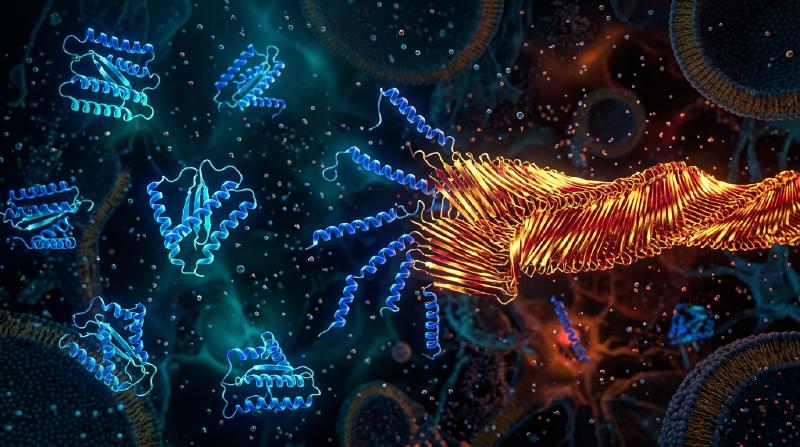
1. Ересь против Центральной догмы: как был открыт инфекционный агент без нуклеиновых кислот
В золотой век молекулярной биологии Центральная догма, сформулированная Фрэнсисом Криком, утвердила незыблемый постулат: любая наследственная информация и способность к самовоспроизведению в живой природе требуют наличия нуклеиновой кислоты (ДНК или РНК). Бактерии, вирусы и вироиды полностью теряют инфекционность при разрушении их генома коротковолновым ультрафиолетом (\(254\,\text{нм}\)), ионизирующим излучением или нуклеазами. Однако возбудитель трансмиссивных губчатых энцефалопатий (ТГЭ) — скрепи овец, куру в Папуа — Новой Гвинее, болезни Крейтцфельдта — Якоба (БКЯ) и коровьего бешенства (ГЭКРС) — опроверг эти правила.
В 1967 году радиобиолог Тиква Альпер показала, что агент скрепи выдерживает экстремальные дозы УФ- и ионизирующего излучения, уничтожающие любой вирусный геном, после чего математик Дж. С. Гриффит предложил первые теоретические модели чисто белковой саморепликации. В 1982 году Стэнли Прузинер (Нобелевская премия 1997 года) выделил инфекционный агент, доказал, что он состоит исключительно из одного хозяйского белка без следов ДНК или РНК, и ввел термин прион (Proteinaceous Infectious Particle — белковая инфекционная частица). Еще более поразительным оказалось то, что ген PRNP, кодирующий этот белок, изначально присутствует в геноме всех здоровых млекопитающих! Нормальный клеточный прионный белок (\(\text{PrP}^\text{C}\)) и патогенная инфекционная изоформа (\(\text{PrP}^{\text{Sc}}\)) имеют абсолютно идентичную последовательность из 208 аминокислот и одинаковые ковалентные связи, различаясь исключительно трехмерной пространственной укладкой (конформацией):
\[ \Delta G_{\text{fold}} = \Delta H_{\text{fold}} - T \Delta S_{\text{conf}} + \Delta G_{\text{solv}}, \qquad k_{\text{conv}} = A \exp\!\left(-\frac{\Delta G^\ddagger_{\text{C}\to\text{Sc}}}{k_B T}\right) \]2. Ландшафт свободной энергии и матричная конверсия: от \(\alpha\)-спирали к кросс-\(\beta\) амилоиду
Согласно термодинамической гипотезе Кристиана Анфинсена, глобулярный белок спонтанно сворачивается в глобальный минимум свободной энергии Гиббса \(G\). Однако в многомерном конформационном пространстве ландшафт свободной энергии часто содержит несколько глубоких минимумов, разделенных высокими кинетическими барьерами активации \(\Delta G^\ddagger\). Нативный \(\text{PrP}^\text{C}\) содержит около \(42\%\) \(\alpha\)-спиралей и лишь \(3\%\) \(\beta\)-слоев; он мономерен, водорастворим и легко расщепляется протеиназой K. Напротив, изоформа \(\text{PrP}^{\text{Sc}}\) состоит на \(43\%\) из жестких кросс-\(\beta\) слоев (Cross-\(\beta\) Sheets), упакованных в нерастворимые и устойчивые к протеазам амилоидные фибриллы.
Для изолированной молекулы \(\text{PrP}^\text{C}\) спонтанное преодоление барьера \(\Delta G^\ddagger_{\text{C}\to\text{Sc}}\) крайне маловероятно (спорадическая БКЯ возникает лишь у \(1\) из миллиона человек в год). Но при появлении кристаллической затравки (Seed) \(\text{PrP}^{\text{Sc}}\) ее открытый кросс-\(\beta\) торец работает как стереохимическая матрица (Structural Template): связывая нормальный мономер \(\text{PrP}^\text{C}\), она резко снижает активационный барьер за счет сети водородных связей и переводит его в конформацию \(\text{PrP}^{\text{Sc}}\). Таким образом, прион не синтезирует белок de novo, а захватывает нормальный \(\text{PrP}^\text{C}\), непрерывно производимый клеткой хозяина (в 1993 году Чарльз Вайсман доказал, что мыши с нокаутом гена Prnp \(Prnp^{0/0}\) абсолютно невосприимчивы к инъекции прионов!).
  flowchart TD
    A["Host PRNP Gene Transcription & Translation"] --> B["Native Cellular Prion Protein PrP^C (42% α-Helix, 3% β-Sheet, Monomeric & Protease-Sensitive)"]
    C["Exogenous or Spontaneous Infectious Seed PrP^Sc (43% Cross-β Sheet Amyloid)"] --> D["Templated Conformational Conversion (PrP^C + PrP^Sc → 2 PrP^Sc)"]
    B --> D
    D --> E["Fibril Elongation at Ends (Rate Constant k+)"]
    E --> F["Chaperone / Mechanical Fragmentation (Rate Constant k-, Doubling Active Catalytic Ends P(t))"]
    F -->|"Autocatalytic Exponential Feedback κ = √(2 k+ k- m0)"| D
3. Почему возможен экспоненциальный рост без генов? Кинетика нуклеации-элонгации-фрагментации
Если бы амилоидная фибрилла лишь присоединяла мономеры на двух своих концах (константа скорости элонгации \(k_+\)), общая масса агрегатов \(M(t)\) росла бы лишь линейно со временем и никогда не вызвала бы лавинообразного экспоненциального взрыва. Кинетическое мастер-уравнение нуклеированной полимеризации, выведенное Туомасом Ноулзом и Микеле Вендрусколо, показало, что физическим двигателем экспоненциального размножения является фрагментация фибрилл (\(k_-\)):
\[ \left\{ \begin{aligned} \frac{dP(t)}{dt} &= k_n m(t)^{n_c} + k_- \big[ M(t) - (2n_c - 1)P(t) \big] \approx k_- M(t) \\ \frac{dM(t)}{dt} &= 2 k_+ m(t) P(t) + n_c k_n m(t)^{n_c} \approx 2 k_+ m_0 P(t) \end{aligned} \right. \]4. Загадка безгеномных «штаммов», межвидовой барьер и «прионоподобное» распространение при нейродегенерации
Когда длинная фибрилла разламывается надвое под действием тепловых флуктуаций или молекулярных шаперонов (например, Hsp104) со скоростью \(k_-\), число каталитически активных концов фибрилл \(P(t)\) мгновенно удваивается! Взаимная связь элонгации (\(k_+\)) и фрагментации (\(k_-\)) порождает дифференциальное уравнение второго порядка \(\ddot{M}(t) = 2 k_+ k_- m_0 M(t)\), обеспечивающее строгий экспоненциальный рост \(M(t) \sim e^{\kappa t}\) с инкрементом \(\kappa = \sqrt{2 k_+ k_- m_0}\). Именно этот принцип лежит в основе сверхчувствительных методов диагностики PMCA и RT-QuIC, позволяющих в миллиарды раз амплифицировать единичные аттограммы (\(10^{-18}\,\text{г}\)) прионов в спинномозговой жидкости.
Криоэлектронная микроскопия (Cryo-EM) разрешила и загадку прионных штаммов (Prion Strains): одна и та же аминокислотная последовательность может кристаллизоваться в различные конформационные полиморфы (разные топологии укладки \(\beta\)-листов и стерических молний), каждый из которых допускает эпитаксиальный рост только собственной геометрии. Сегодня установлено, что белки \(\text{A}\beta\) и \(\text{Tau}\) при болезни Альцгеймера, \(\alpha\)-синуклеин при болезни Паркинсона и TDP-43 при БАС распространяются по мозгу по точно такому же прионоподобному («prion-like») механизму, тогда как функциональные прионы \([\text{PSI}^+]\) у дрожжей и белок синаптической памяти CPEB служат примером полезной эпигенетической памяти.
| Критерий сравнения | Нативный прионный белок (\(\text{PrP}^\text{C}\)) | Инфекционный прион (\(\text{PrP}^{\text{Sc}}\)) | Классический вирус (Virus) |
|---|---|---|---|
| Геном (ДНК/РНК) | Отсутствует (кодируется геном хозяина PRNP) | Полностью лишен ДНК и РНК | Обязательно содержит геном ДНК или РНК |
| Вторичная структура | \(\approx 42\%\) \(\alpha\)-спираль, \(\approx 3\%\) \(\beta\)-слой | \(\approx 30\%\) \(\alpha\)-спираль, \(\approx 43\%\) кросс-\(\beta\) слой | Белковый капсид, окружающий нуклеиновую кислоту |
| Физико-химические свойства | Растворимый мономер, чувствителен к протеиназе K | Нерастворимый амилоид, устойчив к протеазам, нагреву и УФ | Инактивируется УФ, радиацией и протеазами |
| Механизм размножения | Спонтанное сворачивание после трансляции | Матричная конверсия + элонгация/фрагментация (\(e^{\kappa t}\)) | Репликация нуклеиновой кислоты и трансляция |