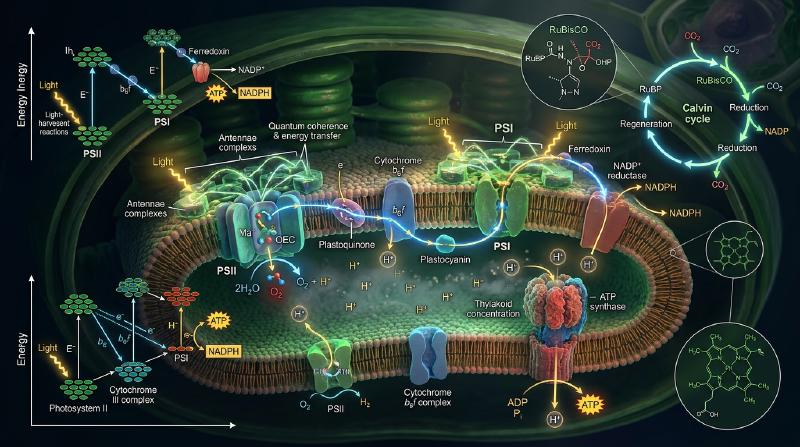
Введение: Главный термодинамический двигатель биосферы
Вся жизнь на планете Земля существует благодаря единственному молекулярному явлению — фотосинтезу.
Ежегодно растительность, водоросли и цианобактерии преобразуют энергию солнечного излучения, связывая свыше 100 миллиардов тонн углекислого газа (\(\text{CO}_2\)) в биомассу и выделяя эквивалентное количество кислорода (\(\text{O}_2\)). Биологическая мощность этого процесса составляет около 100 тераватт (\(100\text{ ТВт}\)).
  flowchart LR
    subgraph PhotosynthesisMacro["Две главные фазы фотосинтеза"]
        direction LR
        subgraph LightReaction["Световая фаза (Мембрана тилакоидов)"]
            Sun["Кванты света (hν)"] --> PSII["Фотосистема II (Фотолиз воды)"]
            H2O["Вода (2H2O)"] --> PSII
            PSII -->|Выделение O2| O2["Кислород (O2)"]
            PSII -->|Электрон-транспортная цепь| Cyt["Цитохром b6f & PSI"]
            Cyt -->|Протон-движущая сила| ATP_Syn["АТФ-синтаза"]
            ATP_Syn --> ATP["Химическая энергия: АТФ"]
            Cyt --> NADPH["Восстановитель: НАДФH"]
        end

        subgraph DarkReaction["Цикл Кальвина (Строма)"]
            CO2["Атмосферный CO2"] --> RuBisCO["Фиксация углерода RuBisCO"]
            ATP -.->|Энергия| RuBisCO
            NADPH -.->|Электроны| RuBisCO
            RuBisCO --> Sugar["Углеводы (G3P / Глюкоза)"]
        end
    end
В то время как кремниевые солнечные элементы с трудом достигают 20% эффективности, перенос энергии возбуждения в светособирающих антеннах работает с квантовым выходом, близким к 100%.
1. Супрамолекулярная структура тилакоидов
Высокая эффективность обеспечивается пространственной сегрегацией белковых комплексов:
- Фотосистема II (ФС II): Локализована в плотно сложенных гранах;
- Фотосистема I (ФС I): Находится на неспаренных мембранах стромальных ламелл;
- Цитохромный комплекс \(b_6f\): Распределен равномерно;
- \(F_oF_1\)-АТФ-синтаза: Сосредоточена исключительно на стромальных мембранах, поскольку крупная головка \(F_1\) не помещается в узкие щели гран.
2. Квантовая биология: Когерентный перенос экситонов
  flowchart TD
    subgraph ExcitonTransfer["Механизм миграции экситонов"]
        Photon["Поглощение фотона"] --> LHC["Антенный комплекс (LHCII)"]
        LHC --> Exciton["Делокализованный экситон Френкеля"]
        Exciton --> FRET["Классический FRET (Случайное блуждание: R⁻⁶)"]
        Exciton --> Coherence["Квантовая когерентность (Волновая суперпозиция)"]
        Coherence --> RC["Сверхбыстрый захват в реакционный центр"]
    end
Двумерная электронная спектроскопия доказала: экситоны движутся как квантово-когерентные волновые пакеты, одновременно сканируя все доступные пути передачи. При поддержке фононов белковой матрицы (ENAQT) экситон достигает ловушки менее чем за \(50\text{ пс}\) с пренебрежимо малыми потерями.
3. Световая фаза: Z-схема и расщепление воды
  flowchart TD
    subgraph ZScheme["Окислительно-восстановительная Z-схема"]
        direction TB
        P680["P680 основное состояние (+1,25 В сильнейший биоокислитель)"]
        P680_star["P680* возбужденное (-0,8 В)"]
        Pheo["Феофитин (-0,6 В)"]
        PQ["Пул пластохинона (PQH2)"]
        Cytb6f["Цитохром b6f (Q-цикл)"]
        PC["Пластоцианин (+0,37 В)"]
        P700["P700 основное состояние (+0,45 В)"]
        P700_star["P700* возбужденное (-1,2 В)"]
        Fd["Ферредоксин (-0,43 В)"]
        NADPH["Образование НАДФH (-0,32 В)"]

        P680 -->|hν 680нм| P680_star --> Pheo --> PQ --> Cytb6f --> PC --> P700
        P700 -->|hν 700нм| P700_star --> Fd --> NADPH
    end
- Радикал-катион \(\text{P680}^{+\bullet}\) обладает потенциалом \(+1,25\text{ В}\) — это единственный биологический агент, способный отрывать электроны от молекул воды.
- Водоокисляющий комплекс (OEC): Содержит кластер \(\text{Mn}_4\text{CaO}_5\). Согласно S-циклу Кока (\(S_0 \rightarrow S_4\)), комплекс накапливает 4 окислительных эквивалента, синхронно расщепляя 2 молекулы воды на 1 молекулу \(\text{O}_2\) и 4 протона:
4. Протон-движущая сила и наномотор АТФ-синтазы
Накопление протонов в просвете тилакоида создает электрохимический градиент (\(\Delta p \approx 200\text{ мВ}\)), обусловленный \(\Delta\text{pH} \approx 2,5 \sim 3,0\).
При обратном токе через \(F_oF_1\)-АТФ-синтазу:
- Кольцо \(c\) ротора \(F_o\) совершает однонаправленное вращение;
- Эксцентричный вал \(\gamma\) циклически меняет конформацию каталитических центров \(\alpha_3\beta_3\), синтезируя 3 молекулы АТФ за один полный оборот с механическим КПД свыше 90%.
5. Цикл Кальвина и парадокс RuBisCO
  flowchart TD
    subgraph CalvinCycle["Стадии цикла Кальвина"]
        S1["Фаза 1: Карбоксилирование (RuBisCO: CO2 + RuBP -> 2 × 3-ФГК)"]
        S2["Фаза 2: Восстановление (Трата 6 АТФ + 6 НАДФH -> 6 G3P)"]
        S3["Фаза 3: Регенерация RuBP (5 G3P + 3 АТФ -> 3 RuBP)"]

        S1 --> S2 --> S3 --> S1
        S2 --> Out["Чистый выход: 1 G3P (Глюкоза и крахмал)"]
    end
Фермент RuBisCO, возникший в бескислородную эпоху, связывает не только \(\text{CO}_2\), но и \(\text{O}_2\). Побочное фотодыхание растрачивает до 40% энергии.
- C4-растения (Кукуруза): Пространственное разделение. Углерод улавливается в мезофилле и нагнетается к RuBisCO в обкладке проводящего пучка.
- CAM-растения (Кактусы): Временное разделение. Устьица открываются ночью для запасания малата, предотвращая потерю влаги днем.
Заключение
Каждый зеленый лист — это квантово-механический шедевр природы, связывающий свет звезд в ткань земной жизни.