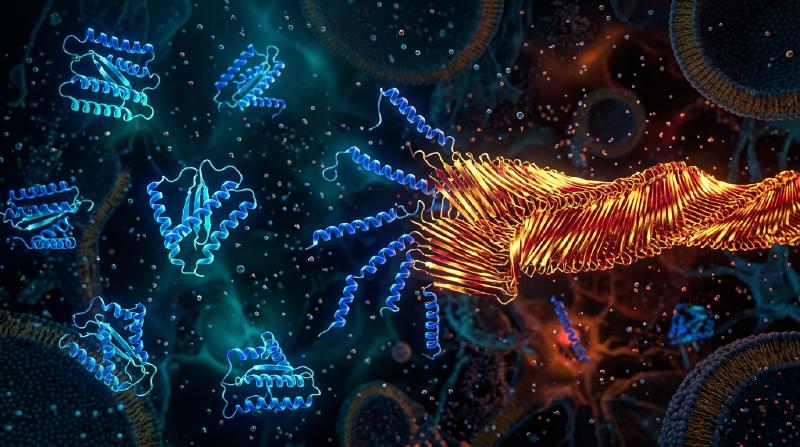
1. Uma heresia contra o Dogma Central: a descoberta de um agente infeccioso sem ácidos nucleicos
Na era de ouro da biologia molecular, o Dogma Central formulado por Francis Crick estabeleceu como princípio absoluto que toda informação hereditária e toda capacidade de autorreplicação biológica dependem necessariamente de ácidos nucleicos (DNA ou RNA). Bactérias, vírus e viroides perdem totalmente sua infecciosidade quando seu genoma é destruído por radiação ultravioleta de onda curta (\(254\,\text{nm}\)), radiação ionizante ou nucleases. Contudo, o agente causador das encefalopatias espongiformes transmissíveis (EET) — como o scrapie ovino, o kuru na Papua-Nova Guiné, a doença de Creutzfeldt-Jakob (DCJ) e a encefalopatia espongiforme bovina (EEB) — desafiava essas leis.
Em 1967, a radiobiologista Tikvah Alper demonstrou que o agente do scrapie resistia a doses extremas de radiação UV e ionizante capazes de aniquilar qualquer genoma viral, levando o matemático J. S. Griffith a propor os primeiros modelos teóricos de autorreplicação puramente proteica. Em 1982, Stanley B. Prusiner (Prêmio Nobel 1997) purificou o agente infeccioso, provou que ele consistia exclusivamente em uma única proteína desprovida de ácido nucleico e cunhou o termo príon (Proteinaceous Infectious Particle). Mais surpreendente ainda foi descobrir que o gene PRNP que codifica essa proteína existe naturalmente no cromossomo de todos os mamíferos saudáveis: a proteína priônica celular normal (\(\text{PrP}^\text{C}\)) e a isoforma patogênica infecciosa (\(\text{PrP}^{\text{Sc}}\)) possuem exatamente a mesma sequência de 208 aminoácidos e as mesmas ligações covalentes; sua única diferença está no dobramento espacial tridimensional:
\[ \Delta G_{\text{fold}} = \Delta H_{\text{fold}} - T \Delta S_{\text{conf}} + \Delta G_{\text{solv}}, \qquad k_{\text{conv}} = A \exp\!\left(-\frac{\Delta G^\ddagger_{\text{C}\to\text{Sc}}}{k_B T}\right) \]2. Paisagem de energia livre e conversão por molde: da hélice \(\alpha\) à fibrila amiloide cross-\(\beta\)
Segundo a hipótese termodinâmica de Christian Anfinsen, uma proteína globular dobra-se espontaneamente em direção ao mínimo global de sua energia livre de Gibbs \(G\). Entretanto, no espaço conformacional de alta dimensão, a paisagem de energia livre frequentemente apresenta múltiplos mínimos locais separados por altas barreiras cinéticas de ativação \(\Delta G^\ddagger\). A forma nativa \(\text{PrP}^\text{C}\) contém cerca de \(42\%\) de hélices \(\alpha\) e apenas \(3\%\) de folhas \(\beta\); é monomérica, solúvel em água e facilmente digerida pela proteinase K. Em contrapartida, a isoforma \(\text{PrP}^{\text{Sc}}\) apresenta \(43\%\) de folhas \(\beta\) cruzadas rígidas (Cross-\(\beta\) Sheets) que se empilham em fibrilas amiloides insolúveis e resistentes a proteases.
Para uma molécula isolada de \(\text{PrP}^\text{C}\), transpor espontaneamente a barreira \(\Delta G^\ddagger_{\text{C}\to\text{Sc}}\) é extremamente improvável (a DCJ esporádica afeta apenas cerca de \(1\) em um milhão de pessoas por ano). Mas quando uma semente cristalina (Seed) de \(\text{PrP}^{\text{Sc}}\) está presente, sua extremidade cross-\(\beta\) exposta atua como um molde estereoquímico (Structural Template) que captura o monômero \(\text{PrP}^\text{C}\) normal, reduz drasticamente a barreira de ativação por meio de ligações de hidrogênio e interações hidrofóbicas, e o converte em uma nova subunidade \(\text{PrP}^{\text{Sc}}\). O príon, portanto, não sintetiza proteínas do nada: ele sequestra a \(\text{PrP}^\text{C}\) continuamente produzida pela célula hospedeira (como provou Charles Weissmann em 1993, camundongos knockout \(Prnp^{0/0}\) sem o gene Prnp são totalmente imunes à inoculação de príons!).
  flowchart TD
    A["Host PRNP Gene Transcription & Translation"] --> B["Native Cellular Prion Protein PrP^C (42% α-Helix, 3% β-Sheet, Monomeric & Protease-Sensitive)"]
    C["Exogenous or Spontaneous Infectious Seed PrP^Sc (43% Cross-β Sheet Amyloid)"] --> D["Templated Conformational Conversion (PrP^C + PrP^Sc → 2 PrP^Sc)"]
    B --> D
    D --> E["Fibril Elongation at Ends (Rate Constant k+)"]
    E --> F["Chaperone / Mechanical Fragmentation (Rate Constant k-, Doubling Active Catalytic Ends P(t))"]
    F -->|"Autocatalytic Exponential Feedback κ = √(2 k+ k- m0)"| D
3. Por que cresce exponencialmente sem genes? Cinética autocatalítica de nucleação-alongamento-fragmentação
Se uma fibrila amiloide apenas adicionasse monômeros em suas duas extremidades (taxa de alongamento \(k_+\)), a massa total de agregados \(M(t)\) cresceria apenas linearmente com o tempo, jamais produzindo a explosão exponencial típica de uma infecção. A equação mestra da polimerização nucleada formulada por Tuomas Knowles e Michele Vendruscolo demonstra que o motor físico da amplificação exponencial é a fragmentação das fibrilas (\(k_-\)):
\[ \left\{ \begin{aligned} \frac{dP(t)}{dt} &= k_n m(t)^{n_c} + k_- \big[ M(t) - (2n_c - 1)P(t) \big] \approx k_- M(t) \\ \frac{dM(t)}{dt} &= 2 k_+ m(t) P(t) + n_c k_n m(t)^{n_c} \approx 2 k_+ m_0 P(t) \end{aligned} \right. \]4. O enigma das «cepas» sem DNA, a barreira de espécie e a propagação «prion-like»
Quando uma fibrila longa se parte em duas por flutuações térmicas ou pelo cisalhamento mecânico de chaperonas moleculares (como Hsp104) a uma taxa \(k_-\), o número de extremidades cataliticamente ativas \(P(t)\) dobra instantaneamente! O acoplamento entre alongamento (\(k_+\)) e fragmentação (\(k_-\)) gera a equação diferencial de segunda ordem \(\ddot{M}(t) = 2 k_+ k_- m_0 M(t)\), impulsionando um crescimento exponencial exato \(M(t) \sim e^{\kappa t}\) com taxa efetiva \(\kappa = \sqrt{2 k_+ k_- m_0}\). Esse mesmo princípio fundamenta as técnicas diagnósticas PMCA e RT-QuIC, capazes de amplificar um bilhão de vezes um único attograma (\(10^{-18}\,\text{g}\)) de príons no líquido cefalorraquidiano.
A criomicroscopia eletrônica (Cryo-EM) também elucidou o mistério das cepas de príons (Prion Strains): uma mesma sequência de aminoácidos pode cristalizar em diferentes polimorfos conformacionais (diferentes topologias de empilhamento \(\beta\) e zíperes estéricos), cada um permitindo apenas o crescimento epitaxial de sua própria geometria. Hoje sabemos que as proteínas \(\text{A}\beta\) e \(\text{Tau}\) no Alzheimer, a \(\alpha\)-sinucleína no Parkinson e TDP-43 na ELA seguem exatamente essa mesma propagação do tipo priônico («prion-like»), enquanto príons funcionais como \([\text{PSI}^+]\) em leveduras e CPEB nas sinapses neuronais mostram como a evolução domesticou essa transição de fase física como memória epigenética.
| Dimensão comparativa | Proteína priônica nativa (\(\text{PrP}^\text{C}\)) | Príon infeccioso (\(\text{PrP}^{\text{Sc}}\)) | Vírus clássico (Virus) |
|---|---|---|---|
| Genoma (DNA/RNA) | Nenhum (codificada pelo gene hospedeiro PRNP) | Totalmente livre de DNA/RNA | Possui obrigatoriamente genoma de DNA ou RNA |
| Estrutura secundária | \(\approx 42\%\) hélice \(\alpha\), \(\approx 3\%\) folha \(\beta\) | \(\approx 30\%\) hélice \(\alpha\), \(\approx 43\%\) folha cross-\(\beta\) | Capsídeo proteico envolvendo o ácido nucleico |
| Propriedades bioquímicas | Monômero solúvel, sensível à proteinase K | Amiloide insolúvel, resistente a proteases, calor e UV | Inativado por UV, radiação e proteases |
| Mecanismo de multiplicação | Dobramento espontâneo pós-traducional | Conversão por molde + alongamento/fragmentação (\(e^{\kappa t}\)) | Replicação de ácido nucleico e tradução |