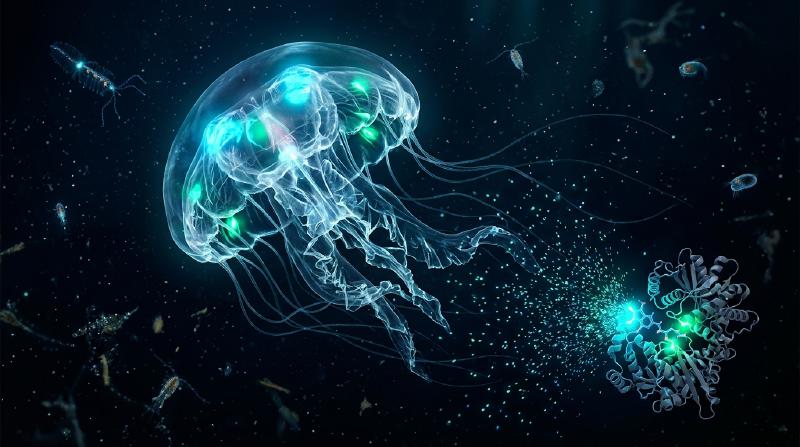
Em uma noite quente de verão, milhares de vaga-lumes (Photinus pyralis, Luciola cruciata) flutuam na escuridão como brasas de esmeralda. A \(1.000\,\text{m}\) abaixo da superfície do oceano — nas zonas mesopelágica e batipelágica onde nenhum fóton solar penetra — mais de \(75\%\) dos organismos pelágicos, desde a lula-vampiro (Vampyroteuthis infernalis) e os peixes-lanterna (Myctophidae) até os tamboris abissais e a água-viva-cristal (Aequorea victoria), iluminam o abismo com clarões azuis e verdes.
As fontes de luz tradicionais, como a chama de uma vela (\(\sim 1.700\,\text{K}\)) ou o filamento de tungstênio de uma lâmpada incandescente (\(\sim 2.800\,\text{K}\)), exigem temperaturas extremas para emitir luz visível, desperdiçando mais de \(90\%\) de sua energia como calor infravermelho. No entanto, se você segurar um vaga-lume na palma da mão, seu abdômen estará completamente frio, à temperatura ambiente (\(T \approx 295\text{–}300\,\text{K}\), ou \(22\text{–}27\,^\circ\text{C}\)). De fato, proteínas e enzimas sofrem desnaturação térmica irreversível acima de \(315\text{–}323\,\text{K}\) (\(42\text{–}50\,^\circ\text{C}\)).
Como a vida contorna as leis da radiação térmica para converter a energia de ligação química diretamente em estados eletrônicos excitados singleto (\(S_1^*\)) a \(300\,\text{K}\), emitindo «luz fria» (Cold Light) com um rendimento quântico de até \(41\%\text{–}88\%\)?
Capítulo 1: Radiação Térmica (Incandescência) vs. Luminescência
1.1 O abismo energético entre um fóton visível e a energia térmica (\(k_B T\))
No espectro visível (\(\lambda = 400\text{–}700\,\text{nm}\)), a energia de um único fóton e seu equivalente molar são dados por:
\[E_{\text{photon}} = h\nu = \frac{hc}{\lambda} \approx \frac{1239,8\,\text{eV}\cdot\text{nm}}{\lambda(\text{nm})}\]- Luz verde-amarelada do vaga-lume (\(\lambda \approx 560\,\text{nm}\)): \(E_{\text{photon}} \approx 2,21\,\text{eV}\), \(E_{\text{mol}} = N_A h\nu \approx 213,6\,\text{kJ/mol}\).
- Luz azul abissal (\(\lambda \approx 470\,\text{nm}\)): \(E_{\text{photon}} \approx 2,64\,\text{eV}\), \(E_{\text{mol}} \approx 254,5\,\text{kJ/mol}\).
Em contraste, a energia térmica média \(k_B T\) à temperatura ambiente (\(T = 300\,\text{K}\)) é apenas:
\[k_B T \big|_{T=300\,\text{K}} \approx 0,02585\,\text{eV}, \qquad RT \big|_{T=300\,\text{K}} \approx 2,494\,\text{kJ/mol}\]Gerar um único fóton visível requer quase 100 vezes o quantum de energia térmica média à temperatura ambiente! Em equilíbrio térmico a \(300\,\text{K}\), a probabilidade de Boltzmann de povoar espontaneamente um estado excitado a \(\Delta E = 2,21\,\text{eV}\) é \(\exp(-\Delta E / k_B T) = \exp(-85,5) \approx 7,4 \times 10^{-38}\) — fisicamente zero.
1.2 Lei de Planck e Lei do Deslocamento de Wien
A radiância espectral \(B_\lambda(\lambda, T)\) de um corpo negro segue a lei de Planck, seu pico de emissão a lei de Wien e sua emitância total a lei de Stefan-Boltzmann:
\[B_\lambda(\lambda, T) = \frac{2hc^2}{\lambda^5} \frac{1}{\exp\left(\dfrac{hc}{\lambda k_B T}\right) - 1}, \qquad \lambda_{\max} \cdot T = 2,8978 \times 10^{-3}\,\text{m}\cdot\text{K}, \qquad J = \sigma T^4\]A \(T = 300\,\text{K}\), o pico situa-se no infravermelho médio (\(\lambda_{\max} \approx 9,66\,\mu\text{m}\)). Mesmo em um filamento de tungstênio a \(2.800\,\text{K}\), o pico permanece no infravermelho próximo (\(\lambda_{\max} \approx 1.035\,\text{nm}\)), dissipando \(>90\%\) da energia elétrica como calor. Apenas a fotosfera solar (\(T \approx 5.778\,\text{K}\)) atinge \(\lambda_{\max} \approx 501\,\text{nm}\).
1.3 Luminescência («Luz Fria»): excitação quântica seletiva fora do equilíbrio
Cunhado em 1888 por Eilhardt Wiedemann, o termo luminescência descreve toda emissão de luz não térmica na qual \(2\text{–}3\,\text{eV}\) são injetados seletivamente em uma transição eletrônica (\(\text{HOMO} \to \text{LUMO}\), \(S_0 \to S_1^*\)) mantendo o meio a \(300\,\text{K}\).
| Categoria de Emissão | Fonte de Excitação | Mecanismo Físico-Químico | Exemplos Representativos | Temperatura |
|---|---|---|---|---|
| Incandescência (Corpo negro) | Agitação térmica (\(k_B T\)) | População térmica indiscriminada de todos os modos | Sol, chama de vela, lâmpada de filamento | \(1.500\text{–}6.000\,\text{K}\) |
| Fluorescência (Fotoluminescência) | Absorção de fóton externo (\(h\nu_{\text{ex}}\)) | Decaimento permitido por spin \(S_1 \to S_0\) (\(\tau \sim 10^{-9}\,\text{s}\)) | GFP (Aequorea), pigmentos de coral, marca-textos | Ambiente (\(\sim 300\,\text{K}\)) |
| Fosforescência | Absorção fotônica + Cruzamento intersistema (ISC) | Transição proibida por spin \(T_1 \to S_0\) (\(\Delta S = 1, \tau \sim 10^{-3}\text{–}10^4\,\text{s}\)) | Tintas luminescentes (\(\text{SrAl}_2\text{O}_4:\text{Eu}^{2+}\)) | Ambiente (\(\sim 300\,\text{K}\)) |
| Eletroluminescência | Campo elétrico / injeção de portadores | Recombinação radiativa elétron-lacuna | LEDs azuis/brancos (\(\text{InGaN}\)), telas OLED | Ambiente |
| Quimioluminescência | Rearranjo químico exotérmico | Clivagem de peróxido que povoa diretamente \(S_1^*\) | Luminol forense, bastões luminosos (oxalato) | Ambiente |
| Bioluminescência | Quimioluminescência catalisada por enzimas | Oxidação da luciferina pela luciferase via 1,2-dioxetanona | Vaga-lumes, Vargula, dinoflagelados, Vibrio, fungos | Fisiológica (\(275\text{–}310\,\text{K}\)) |
Capítulo 2: Bioluminescência vs. Fluorescência (GFP) vs. Fosforescência e BRET
É fundamental distinguir entre bioluminescência e biofluorescência (como a GFP):
- A fluorescência (ex. GFP) é um processo fotofísico que exige obrigatoriamente luz de excitação externa (\(h\nu_{\text{ex}}\), UV ou azul). Após absorver o fóton (\(10^{-15}\,\text{s}\)) e perder parte da energia por relaxação vibracional (\(10^{-12}\,\text{s}\)), emite em nanossegundos (\(\tau \approx 10^{-9}\,\text{s}\)) um fóton de maior comprimento de onda (deslocamento de Stokes, \(\lambda_{\text{em}} > \lambda_{\text{ex}}\)). Na escuridão total sem lâmpada externa, um organismo fluorescente não brilha!
- A fosforescência envolve um cruzamento intersistema (ISC) do estado singleto \(S_1\) (\(\uparrow\downarrow, S=0\)) para o estado tripleto \(T_1\) (\(\uparrow\uparrow, S=1\)), cuja emissão \(T_1 \to S_0\) é proibida por spin (\(\Delta S = 1\)), prolongando o brilho de milissegundos a horas.
- A bioluminescência é um processo fotoquímico (quimioexcitação) que opera na escuridão absoluta sem luz externa: a oxidação catalítica da luciferina pela luciferase cruza diretamente para a superfície excitada \(\text{Oxiluciferina}^*(S_1)\).
  flowchart TD
    subgraph INC ["1. Incandescência (Radiação térmica de corpo negro)"]
        T1["Aquecimento extremo (T > 2.500 K)<br/>Agitação térmica indiscriminada de todos os modos"] --> T2["Espectro contínuo de Planck B_λ(T)<br/>(>90% perdido como calor IR; letal para proteínas)"]
    end

    subgraph FL ["2. Fotoluminescência: Fluorescência (GFP) e Fosforescência"]
        F1["Absorção de fóton externo (hν_ex: UV / Azul)<br/>Estado fundamental S0 → Singleto excitado S1 (10^-15 s)"] --> F2["Relaxação vibracional (10^-12 s)<br/>Deslocamento de Stokes (λ_em > λ_ex)"]
        F2 --> F3["Fluorescência permitida S1 → S0 + hν_em (10^-9 s)<br/>*Totalmente escuro sem luz externa!*"]
        F2 -.->|"Cruzamento intersistema (ISC: ΔS = 1)"| F4["Fosforescência proibida T1 → S0 + hν_ph<br/>(Persistência de 10^-3 s a horas)"]
    end

    subgraph BL ["3. Bioluminescência ('Luz fria' a 300 K)"]
        B1["Luciferina + O2 (+ ATP ou Ca2+)<br/>Ligada ao sítio ativo da luciferase a 300 K"] --> B2["Anel peróxido de quatro membros tensionado<br/>(Intermediário 1,2-dioxetanona)"]
        B2 --> B3["Clivagem concertada CIEEL e Quimioexcitação (-CO2)<br/>Cruzamento direto de superfícies S0 → S1*"]
        B3 --> B4["Oxiluciferina*(S1) → Oxiluciferina(S0) + hν<br/>(Zero luz externa necessária; Φ_BL de 41 a 88%)"]
    end

    subgraph BRET_BOX ["4. Transferência de Energia por Ressonância de Bioluminescência (BRET em Aequorea victoria)"]
        BR1["Aequorina (Coelenterazina + Ca2+)<br/>A quimioexcitação cria o doador azul S1* (470 nm)"] -->|"Acoplamento dipolo-dipolo de Förster (r < 5 nm)<br/>Transferência não radiativa E = 1/(1+(r/R0)^6)"| BR2["Excita o cromóforo da GFP (Ser65-Tyr66-Gly67)<br/>Emite fóton verde (λ = 509 nm)"]
    end
2.2 Osamu Shimomura (Prêmio Nobel 2008) e o acoplamento BRET entre Aequorina e GFP
Ao investigar a água-viva Aequorea victoria (que brilha em verde a \(509\,\text{nm}\)), Osamu Shimomura descobriu que a fotoproteína purificada Aequorina (com coelenterazina e ativada por \(\text{Ca}^{2+}\)) emite luz azul (\(\lambda_{\max} = 470\,\text{nm}\)) em tubo de ensaio. No órgão luminoso da água-viva, a Aequorina transfere sua energia de excitação de forma não radiativa a uma distância \(r \approx 2\text{–}5\,\text{nm}\) para a proteína verde fluorescente (GFP) via BRET (Bioluminescence Resonance Energy Transfer) por acoplamento dipolo-dipolo de Förster:
\[E_{\text{BRET}} = \frac{1}{1 + \left(\dfrac{r}{R_0}\right)^6}, \qquad R_0^6 \propto \kappa^2 \, \Phi_D \, n^{-4} \int_0^\infty F_D(\lambda)\, \varepsilon_A(\lambda)\, \lambda^4 \, d\lambda\]Capítulo 3: Química Quântica da Reação Luciferina–Luciferase do Vaga-lume
A reação nos peroxissomos das células fotocíticas de Photinus pyralis ou Luciola emprega D-luciferina, a enzima luciferase (\(61\,\text{kDa}\)), \(\text{ATP}\), \(\text{Mg}^{2+}\) e \(\text{O}_2\) em quatro etapas:
- Etapa 1: Adenilação (Ativação do substrato) — Desmistificando o papel do ATP \(\text{D-Luciferina} + \text{ATP} \xrightarrow{\text{Luciferase, Mg}^{2+}} \text{E}\cdot\text{D-Luciferil-AMP} + \text{PP}_i\) Esclarecimento termodinâmico essencial: A hidrólise do ATP (\(\Delta G^{\circ\prime} \approx -30,5\,\text{kJ/mol}\)) não fornece os \(214\,\text{kJ/mol}\) de um fóton de \(560\,\text{nm}\). O ATP atua como ativador cinético: converte o grupo \(-\text{COO}^-\) no éster acil-adenilato (\(-\text{CO-AMP}\)), reduzindo drasticamente o \(pK_a\) do próton C4 para formar um carbânion e instalando um excelente grupo abandonador (\(-\text{AMP}\)).
- Etapa 2: Transferência Monoeletrônica (SET), Oxigenação e Ciclização a 1,2-Dioxetanona O carbânion C4 reage com o oxigênio tripleto (\(^3\text{O}_2\)) via SET formando um hidroperóxido que expulsa \(\text{AMP}\) por substituição nucleofílica intramolecular, fechando um anel peróxido de quatro membros altamente tensionado: a 1,2-dioxetanona (\(\alpha\)-peroxilactona).
- Etapa 3: Mecanismo CIEEL / CTIL e Interseção Cônica \(S_0/S_1\) A decomposição da 1,2-dioxetanona em oxiluciferina e \(\text{CO}_2\) libera \(\Delta H \approx -280\text{ a }-320\,\text{kJ/mol}\) ao aliviar a tensão do anel (\(\sim 110\,\text{kJ/mol}\)), romper a fraca ligação \(\text{O}-\text{O}\) (\(\sim 140\,\text{kJ/mol}\)) e formar as duas ligações duplas ultraestáveis \(\text{C}=\text{O}\) do \(\text{CO}_2\). Segundo as regras de simetria orbital de Woodward–Hoffmann e o mecanismo CIEEL / CTIL, o fenolato desprotonado (\(-\text{O}^-\)) transfere densidade eletrônica para o orbital antiligante \(\sigma^*(\text{O}-\text{O})\). Como a clivagem concertada no estado fundamental \(S_0\) é proibida por simetria orbital, a superfície \(S_0\) sobe abruptamente e cruza a superfície excitada singleto \(S_1\) em uma interseção cônica (Conical Intersection). Com a saída do \(\text{CO}_2\), a retrodoação eletrônica povoa diretamente o \(\text{LUMO}(\pi^*)\), gerando \(\text{Oxiluciferina}^*(S_1)\) a \(300\,\text{K}\).
- Etapa 4: Emissão de Fótons, Rendimento Quântico (\(\Phi_{\text{BL}}\)) e Sintonia de Cor \(\text{Oxiluciferina}^*(S_1) \longrightarrow \text{Oxiluciferina}(S_0) + h\nu \quad (\lambda_{\max} \approx 560\,\text{nm}), \qquad \Phi_{\text{BL}} = \Phi_{\text{chem}} \times \Phi_{\text{ex}} \times \Phi_{\text{fl}}\) Medições absolutas com esfera integradora determinaram \(\Phi_{\text{BL}} = 41,0 \pm 7,4\%\) em pH 8,5 (Ando et al., 2008, Nature Photonics). Sintonia de cor (\(538\,\text{nm}\) verde a \(622\,\text{nm}\) vermelho): Todos os besouros bioluminescentes (incluindo a larva-trenzinho sul-americana Phrixothrix, com lanternas vermelhas na cabeça a \(622\,\text{nm}\) e verdes nas laterais a \(546\,\text{nm}\)) usam a mesma D-luciferina! Nakatsu et al. (2006, Nature) demonstraram que o resíduo Ile288 atua como uma comporta hidrofóbica rígida que impede a torção TICT e a entrada de água para emitir luz verde-amarelada (\(560\,\text{nm}\)), enquanto em pH ácido (6,0) ou em mutantes a cavidade relaxa, estabilizando o estado \(S_1^*\) e deslocando a emissão para o vermelho (\(615\,\text{nm}\), deslocamento batocrômico).
  flowchart TD
    S1["<b>Etapa 1: Adenilação (Ativação do substrato)</b><br/>D-Luciferina + ATP + Mg2+ → D-Luciferil-AMP + PPi<br/>(Reduz o pKa de C4-H e instala o grupo abandonador -AMP)"]
    S2["<b>Etapa 2: Oxigenação e Ciclização Peróxido</b><br/>Carbânion C4 + O2 (SET) → Hidroperóxido<br/>→ Ataque intramolecular (-AMP) → <b>Anel 1,2-Dioxetanona</b>"]
    S3["<b>Etapa 3: Quimioexcitação CIEEL / CTIL</b><br/>O fenolato (-O-) doa um elétron para σ*(O-O)<br/>→ Clivagem concertada (-CO2, ΔH ≈ -300 kJ/mol)<br/>→ Interseção cônica S0/S1 → <b>Oxiluciferina*(S1, π*)</b>"]
    S4["<b>Etapa 4: Decaimento Radiativo e Cor</b><br/>Oxiluciferina*(S1) → Oxiluciferina(S0) + hν (Φ_BL ≈ 41–88%)"]

    C1["<b>Emissão Verde-Amarelada (λ ≈ 550–560 nm, pH 8,0)</b><br/>Cavidade hidrofóbica rígida fechada (comporta Ile288)<br/>Suprime torção TICT e relaxação polar → Alto ΔE"]
    C2["<b>Emissão Vermelha (λ ≈ 615–622 nm, pH 6,0 / Mutantes)</b><br/>Bolso flexível permite entrada de água e relaxação<br/>Estabiliza o estado S1* → Deslocamento batocrômico"]

    S1 --> S2 --> S3 --> S4
    S4 --> C1
    S4 --> C2
Capítulo 4: Evolução Convergente (40–90+ Origens) e Ecologia do Mar Profundo
A bioluminescência evoluiu de forma independente entre 40 e mais de 90 vezes (Haddock et al., 2010) a partir de pigmentos antioxidantes detoxificadores de espécies reativas de oxigênio (ROS):
- Sistemas marinhos de coelenterazina e vargulina (Cypridina): Mais de \(75\%\) dos organismos mesopelágicos brilham. A coelenterazina é empregada em mais de nove filos animais (frequentemente adquirida na dieta) e emite luz azul (\(\lambda_{\max} = 450\text{–}490\,\text{nm}\)), coincidindo com a janela de máxima transmissão óptica da água do mar. O ostracode Vargula hilgendorfii expele nuvens luminosas azuis (\(462\,\text{nm}\)) usando vargulina.
- Dinoflagelados (Noctiluca) e canais de prótons dependentes de voltagem (\(\text{H}_v1\)): A tensão de cisalhamento hidrodinâmica das ondas despolariza a membrana vacuolar e abre os canais \(\text{H}_v1\), reduzindo o pH dos scintillons de \(8,0\) para \(6,0\) em milissegundos e disparando um flash azul de \(100\,\text{ms}\) (\(475\,\text{nm}\)) como «alarme contra ladrões» (Burglar Alarm).
- Operon bacteriano
luxCDABEGe percepção de quórum (Quorum Sensing): As bactérias simbióticas Aliivibrio fischeri (na lula Euprymna scolopes) oxidam \(\text{FMNH}_2\) e um aldeído de cadeia longa (\(\text{RCHO}\)) a \(490\,\text{nm}\) apenas quando o autoindutor AHL supera um limiar de alta densidade celular (\(>10^{10}\,\text{células/mL}\)). - Ciclo fúngico do ácido cafeico (Mycena, Neonothopanus): Quatro enzimas (
HispS,H3H,Luz,CPH) convertem o ácido cafeico em 3-hidroxihispidina, que emite luz verde (\(520\text{–}530\,\text{nm}\)) e é reciclada de volta a ácido cafeico (Kotlobay et al., 2018, PNAS). - Contrailuminação e holofotes vermelhos furtivos (Malacosteus niger): Os peixes-lanterna apagam sua silhueta ventral mediante contrailuminação azul (\(475\,\text{nm}\)), enquanto o peixe-dragão Malacosteus niger emite luz vermelho-distante/infravermelho próximo (\(>700\,\text{nm}\)) acoplada a um fotossensibilizador derivado de clorofila para caçar presas vermelhas sem ser detectado.
Capítulo 5: Imagem Médica (AkaBLI), Higiene por ATP e Plantas Autoluminescentes
- Imagem por Bioluminescência in vivo (BLI) e o Sistema Infravermelho Próximo AkaBLI: Sem ruído de autofluorescência, a BLI alcançou um marco quando Iwano & Miyawaki et al. (2018, Science, RIKEN) desenharam o par AkaLumine-HCl / AkaLuc (\(\lambda_{\max} = 677\,\text{nm}\) na janela biológica infravermelha), aumentando em 1.000 vezes a sensibilidade profunda e permitindo visualizar uma única célula cancerosa metastática nos pulmões de um camundongo vivo.
- NanoLuc e Luminômetros de Higiene por ATP: A luciferase NanoLuc (\(19\,\text{kDa}\)) do camarão abissal Oplophorus brilha \(150\times\) mais que a de vaga-lume; os luminômetros de ATP quantificam \(10^{-15}\text{–}10^{-18}\,\text{mol}\) de ATP microbiano em 10 segundos para controle cirúrgico, alimentar e espacial.
- Plantas Autoluminescentes (Firefly Petunia): Ao transferir os quatro genes do ciclo fúngico do ácido cafeico (precursor universal da lignina vegetal) para o tabaco e a petúnia (Mitiouchkina et al., 2020, Nature Biotechnology), criaram-se plantas que brilham com luz verde visível a olho nu durante toda a sua vida sem substratos externos.