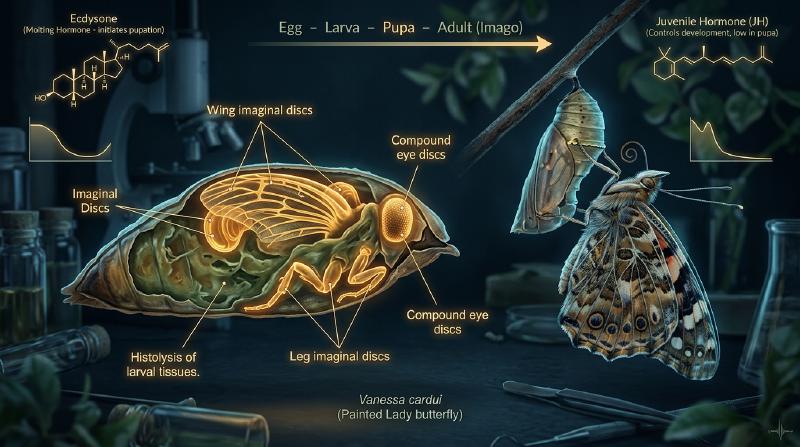
一條在植物葉片上瘋狂啃食的肥碩毛毛蟲,吐絲作繭或化為靜止僵硬的蛹,數日之後,蛹殼破裂,一隻擁有絢麗對稱雙翅的斑斕蝴蝶破繭而出——完全變態(Holometaboly)是地球生命演化史上最為震撼而充滿詩意的生物學飛躍之一。
在公眾的普遍認知中,流傳著一個極其著名的說法:「毛毛蟲在蛹殼裡會徹底融化成一灘沒有結構的肉湯,然後再重新從零組裝成一隻蝴蝶」。然而,現代發育生物學、分子遺傳學以及微焦點X射線CT成像技術向我們揭示了一個更加精巧、更具工程美感的生命真相。
毛毛蟲的幼蟲組織確實經歷了劇烈的組織崩解(Histolysis),數以億計的幼蟲細胞通過凋亡(Apoptosis)和自噬(Autophagy)進行程序性自溶。但蛹內絕非毫無秩序的混沌湯液。早在胚胎發育的最早期,毛毛蟲體內就已經埋下了數對處於休眠狀態的、高度特化的二倍體祖細胞團——成蟲原基(Imaginal Discs)。
當幼蟲器官自溶崩解並釋放出海量胺基酸與脂質養分時,成蟲原基吸收了這場生化洪流。在蛻皮激素與形態發生素濃度梯度的精密指引下,原基細胞發生爆發性有絲分裂,像折疊望遠鏡一般向外立體翻轉展開,以令人驚嘆的自組織能力重建出成蟲的翅膀、複眼、觸角與足部。
本文將深入分子內核,全方位剖析昆蟲完全變態的內分泌蹺蹺板機制、萬聖節基因簇、成蟲原基的三維形態發生、記憶在變態過程中的跨階段保留,以及昆蟲生長調節劑在現代生物技術中的前沿應用。
1. 變態樣式的宏觀演化:完全變態為何能統治地球陸地?
現生昆蟲綱(六足亞門)根據其變態發育模式,清晰地劃分為三大類群:
  flowchart TD
    subgraph InsectMetamorphosis ["昆蟲的三大發育模式"]
        Ametaboly["無變態 (Ametaboly)<br/>• 代表物種: 衣魚、石蛃<br/>• 幼體形態與成蟲基本一致<br/>• 僅通過持續蛻皮實現體型等比例增長"]
        Hemimetaboly["不完全變態 (Hemimetaboly)<br/>• 代表物種: 蝗蟲、螳螂、蟬、蜻蜓<br/>• 無蛹期,若蟲(Nymph)體外翅芽逐齡生長<br/>• 幼體與成體生態位重疊嚴重"]
        Holometaboly["完全變態 (Holometaboly)<br/>• 代表物種: 鞘翅目、鱗翅目、膜翅目、雙翅目<br/>• 卵 → 幼蟲 → 蛹 → 成蟲 四階段<br/>• 翅和附肢作為成蟲原基在體內隱秘分化"]
    end
在地球上已知的所有動物物種中,超過60%屬於完全變態昆蟲(內生翅類: Endopterygota);而在昆蟲綱內部,這一比例更高達85%以上。甲蟲(鞘翅目)、蝶蛾(鱗翅目)、蜂蟻(膜翅目)與蚊蠅(雙翅目)這四大超級多樣性目全部屬於完全變態類群。
徹底消除親子世代資源競爭的生態位解耦
在不完全變態昆蟲(如蝗蟲)中,幼蟲(若蟲)和成蟲長著完全相同的咀嚼式口器,生活在同一片草叢中,爭奪完全相同的植物葉片。這種生態位的高度重疊帶來了巨大的種內競爭壓力。
而完全變態則創造性地打破了這一瓶頸,實現了生態學上的極致分工:
- 幼蟲(毛毛蟲、蛆、蛴螬):移動遲緩,專職攝食,體內消化器官極度膨大,在幾週內將體重暴增數千倍,是一台純粹的「生物量積累與營養儲存機器」;
- 成蟲(蝴蝶、蛾、蜜蜂):放棄了沉重的幼蟲消化道,演化出虹吸式口吻吸食花蜜,擁有廣闊的複眼與強悍的飛行翅膀,是一台專職「基因擴散、遷徙與有性生殖機器」。
幼蟲與成蟲在食物來源、生活空間與行為模式上實現了100%的物理隔離,消除了親子世代之間的資源內耗,從而推動完全變態昆蟲征服了陸地生態系統的每一個角落。
2. 內分泌調控網絡:保幼激素(JH)與蛻皮激素(20E)的生化蹺蹺板
昆蟲生命史中的每一次蛻皮、化蛹與羽化,均由兩大腦內分泌激素的濃度比率精準驅動:保幼激素(Juvenile Hormone: JH)與類固醇激素20-羥基蛻皮酮(20-Hydroxyecdysone: 20E)。
  flowchart TD
    subgraph EndocrineAxis ["昆蟲變態的內分泌控制軸"]
        Brain["腦部神經分泌細胞"] -->|神經肽脈衝| PTTH["促前胸腺激素 (PTTH)"]
        PTTH --> ProthoracicGland["前胸腺 (Prothoracic Gland)"]
        ProthoracicGland -->|類固醇前體| Ecdysone["蛻皮酮 (Ecdysone)"]
        Ecdysone --> PeripheralTissues["外周組織 (脂肪體) 羥化"]
        PeripheralTissues --> Active20E["活性 20-羥基蛻皮酮 (20E)"]

        CA["咽側體 (Corpora Allata)"] -->|倍半萜類分泌| JH["保幼激素 (Juvenile Hormone: JH)"]

        Active20E --> MetamorphosisSwitch{"蛻皮期 JH / 20E 比值"}
        JH --> MetamorphosisSwitch

        MetamorphosisSwitch -->|高 JH + 20E 脈衝| LarvalMolt["幼蟲-幼蟲蛻皮 (維持幼體生長)"]
        MetamorphosisSwitch -->|痕量 JH + 20E 脈衝| PupalCommitment["化蛹決定蛻皮 (變態啟動)"]
        MetamorphosisSwitch -->|零 JH + 20E 脈衝| AdultEclosion["成蟲分化與羽化"]
    end
萬聖節基因簇(Halloween Genes)與蛻皮激素合成
前胸腺將膳食膽固醇轉化為活性20E的過程,由一系列高度保守的細胞色素P450單加氧酶嚴格把控。由於突變體胚胎角質層發育畸形宛如萬聖節幽靈面具,這些催化酶基因被形象地命名為萬聖節基因簇:
- Neverland (Nvd):在起始端催化膽固醇轉化為7-脫氫膽固醇;
- Spook (CYP307A1):催化未知的「黑匣子」限速氧化步驟生成二酮二醇前體;
- Phantom (CYP306A1):催化C-25位羥化生成酮三醇;
- Disembodied (CYP302A1):催化C-22位羥化生成2-脫氧蛻皮酮;
- Shadow (CYP315A1):在前胸腺內完成C-2位羥化合成蛻皮酮並分泌入血;
- Shade (CYP314A1):在外周組織(特別是脂肪體)中催化C-20位羥化,最終產生活性極高的20-羥基蛻皮酮(20E)。
保幼激素、Kr-h1與Broad-Complex的分子制動
保幼激素(JH)由咽側體合成,其核心作用是發出「維持幼蟲狀態」的遺傳指令:
- JH分子穿透細胞膜,結合細胞核內的bHLH-PAS家族受體Met(Methoprene-tolerant)與Gce(Germ cell-expressed)。
- 活化的Met/Gce複合物直接驅動鋅指轉錄因子Krüppel-homolog 1(Kr-h1)的高水平表達。
- Kr-h1是化蛹的主制動閥:它牢牢結合在化蛹關鍵主控基因Broad-Complex(BR-C)的啟動子上,強力阻斷其轉錄。
- 在終齡幼蟲末期,咽側體停產JH,血淋巴中的JH酯酶和環氧化物水解酶迅速清除殘留JH。在JH徹底歸零後,新一輪20E脈衝來臨,解除Kr-h1的抑制,促使BR-C爆發性表達,正式敲開化蛹與成蟲原基啟動的閘門。
3. 成蟲原基(Imaginal Discs):藏於毛蟲體內的隱形藍圖
成蟲原基並非幼蟲進入蛹期後臨時憑空生成的組織,而是在卵內胚胎發生的極早期,由十幾個到幾十個外胚層細胞預先決定(Determination)而成的獨立細胞集團。
  flowchart LR
    subgraph ImaginalDiscMapping ["成蟲原基與成蟲器官的對應關係"]
        EyeAntenna["複眼-觸角原基 (Eye-Antennal Disc)"] --> AdultHead["成蟲複眼、單眼、觸角與頭部骨片"]
        WingDisc["中胸翅原基 (Wing Disc)"] --> AdultWing["成蟲前翅與中胸背板 (Notum)"]
        HaltereDisc["後胸原基 (Haltere Disc)"] --> AdultHaltere["後翅 (蝴蝶) 或 平衡棒 (蒼蠅)"]
        LegDiscs["三對足原基 (Leg Discs T1-T3)"] --> AdultLegs["成蟲的三對步足"]
        GenitalDisc["生殖原基 (Genital Disc)"] --> AdultGenitalia["交尾器、產卵瓣與內外生殖管道"]
    end
二倍體靜止與幼蟲多倍體化的分野
幼蟲在瘋狂啃食生長的過程中,其絕大多數體細胞(表皮、中腸、唾液腺)並不通過正常的細胞分裂增殖,而是進行核內DNA複製(Endoreplication / 多倍體化),細胞核體積增大幾十甚至上百倍以支撐海量蛋白質合成。
然而,成蟲原基細胞完全拒絕多倍體化。它們始終保持純正的二倍體狀態(Diploid),通過受控的有絲分裂靜靜增殖。原基上皮向內凹陷,形成懸掛在體壁內側、浸泡在血淋巴中的囊袋狀單層上皮結構。例如,在果蠅終齡幼蟲體內,單個翅原基已從最初的幾十個祖細胞分裂壯大至約50,000個細胞。
伸縮望遠鏡般的同心折疊幾何學
成蟲原基的上皮層極其緻密地折疊成同心褶皺。以足原基為例,它就像一架收攏緊縮的便攜式伸縮望遠鏡:
- 原基中心的最深處,決定了未來步足的最末端——跗節和爪;
- 外圍一圈圈的同心環,依次對應脛節、股節、轉節與基節。 一旦變態信號觸發,折疊的上皮層像傘面一般向外翻轉伸長(Eversion),短短數小時內就能構建出修長的關節肢體。
4. 空間座標體系:形態發生素濃度梯度的笛卡爾編碼
微小的上皮平面如何知道何處長出翅脈、何處生出翅緣剛毛?發育生物學通過成蟲原基確立了經典的形態發生素濃度梯度(Morphogen Gradient)理論。
  flowchart TD
    subgraph CoordinateSystem ["翅原基的正交空間座標系建立"]
        APAxis["前後軸 (A/P) 劃分<br/>• 後部細胞表達 Engrailed (En)<br/>• 隔室分界處分泌 Hedgehog (Hh)<br/>• Hh 誘導 Decapentaplegic (Dpp) 跨區長距離擴散梯度"]
        DVAxis["背腹軸 (D/V) 劃分<br/>• 背側細胞表達 Apterous (Ap)<br/>• 邊界激活 Notch,分泌 Wingless (Wg) 梯度<br/>• 精準確立翅緣 (Wing Margin)"]
        PDAxis["近遠軸 (P/D) 展開<br/>• Dpp 與 Wg 正交相交的極值點確立翅尖 (Wing Tip)<br/>• 啟動 Distal-less 與 Vestigial 級聯"]
        APAxis --> PositionalGrid["2D 二維極座標分子地址編碼"]
        DVAxis --> PositionalGrid
        PositionalGrid --> PDAxis
    end
- 前後軸(A/P)劃分:後部細胞表達轉錄因子Engrailed(En),促使細胞分泌短程信號分子Hedgehog(Hh)。Hh跨越邊界擴散至前部細胞,激活BMP通路長程形態發生素Decapentaplegic(Dpp)的合成。Dpp雙向擴散形成的坡度賦予細胞前後方向的位置信息。
- 背腹軸(D/V)劃分:背側細胞特異表達LIM同源盒轉錄因子Apterous(Ap)。在背腹交界面處,Notch信號被激活並誘導Wnt家族形態發生素Wingless(Wg)的線性分泌,精確鎖定未來翅的外緣輪廓。
- 座標交匯與三維展開:Dpp與Wg濃度梯度的垂直正交交匯點,就是未來翅膀的最遠端(翅尖)。每個細胞讀取體內的形態發生素濃度組合,如同讀取GPS地理座標,準確激活對應的結構基因。
5. 蛹內大解體:組織崩解(Histolysis)與營養循環
在靜止不動的蛹殼內部,發生著動物界最劇烈的組織大清洗。
「毛毛蟲化成一灘爛泥」在細胞層面上是千真萬確的事實——這就是組織崩解(Histolysis)。
  sequenceDiagram
    autonumber
    participant LarvalOrgans as 幼蟲組織 (中腸, 幼蟲肌肉, 脂肪體)
    participant Caspases as 20E脈衝 & 胱天蛋白酶級聯
    participant Phagocytes as 血淋巴吞噬細胞 (巨噬細胞)
    participant ImaginalDiscs as 成蟲原基 (翅, 腳, 複眼)

    Note over LarvalOrgans,ImaginalDiscs: 化蛹啟動:JH歸零,高濃度20E脈衝來臨
    Caspases->>LarvalOrgans: 誘導 reaper, hid, grim → 點燃凋亡與自噬程序
    LarvalOrgans->>LarvalOrgans: 溶酶體組織蛋白酶活化,肌原纖維與細胞骨架徹底水解
    Phagocytes->>LarvalOrgans: 吞噬並消化細胞碎片與凋亡小體
    Phagocytes->>ImaginalDiscs: 將分解後的胺基酸、糖類與脂質釋放入血淋巴
    ImaginalDiscs->>ImaginalDiscs: 原基細胞吸收充足養料,爆發性分裂重構成蟲身體
幼蟲器官的程序性自我毀滅
- 巨大中腸的脫落:幼蟲用於消化粗纖維的大型中腸上皮發生同步凋亡,整體縮攏脫落並排入消化道管腔,形成成蟲羽化後排出的第一團代謝廢物——胎糞(Meconium);由成蟲腸祖細胞重建全新輕便的成蟲腸道。
- 縱走爬行肌肉的液化:負責毛毛蟲蠕動爬行的粗壯肌肉群,在泛素-蛋白酶體系統和組織蛋白酶(Cathepsins)的瘋狂切割下解體液化,釋放出巨量游離胺基酸。
- 成蟲原基為何能免遭融化?:幼蟲細胞與原基細胞在面對同樣的20E刺激時,其基因線路呈現相反的邏輯。幼蟲細胞內的EcR受體直接打開凋亡基因(reaper, hid, grim)的啟動子;而在成蟲原基細胞中,多梳家族蛋白(PcG)嚴密沉默了凋亡位點,20E轉而激活細胞週期素與生長因子,使成蟲原基在營養的狂潮中瘋狂生長。
6. 成蟲形態發生與翅膀奈米光學工程
當成蟲器官完成翻轉展開後,最終的羽化過程展示了生物物理學令人驚嘆的力學與光學控制。
  flowchart TD
    subgraph EclosionBiophysics ["羽化與翅膀硬化成型過程"]
        Hydraulic["1. 血淋巴液壓泵驅動<br/>• 腹部肌肉強力節律收縮<br/>• 將血淋巴強行泵入微細翅脈中<br/>• 褶皺的翅片在流體靜壓下充氣展開"]
        Bursicon["2. 羽化激素與膨翅素 (Bursicon) 釋放<br/>• 神經分泌細胞向血液釋放神經肽 Bursicon<br/>• 結合表皮細胞 LGR4/5 受體,激活 cAMP 通路"]
        Sclerotization["3. 幾丁質交聯與鞣化硬化<br/>• 合成 NADA 與 NBAD,氧化為高活性醌類<br/>• 醌類使表皮蛋白與幾丁質纖維共價交聯硬化"]
        Hydraulic --> Bursicon --> Sclerotization
    end
蝶翅鱗片的微納光子晶體架構
蝴蝶翅膀上的斑斕色彩,特別是大藍閃蝶(Morpho)那種永不褪色的金屬光澤,並非源於化學色素,而是極致的物理結構色(Structural Color):
- 單個表皮前體細胞經不對稱分裂,分化出插座細胞(Tormogen)與產鱗細胞(Trichogen);
- 產鱗細胞向外伸出充滿肌動蛋白微絲骨架的扁平突起,在其表面沉積幾丁質外骨骼;
- 幾丁質薄層自組織排列成高度精密的「聖誕樹」狀微觀棚架結構,層間距精確維持在約 140 奈米;
- 當白光射入時,週期性奈米薄層發生多光束干涉,波長約 450 nm 的藍光產生極強的相長干涉反射,其他波長的光則相互抵消,造就了生物光學史上最璀璨的傑作。
7. 跨越變態的記憶保留:毛毛蟲的經歷蝶會記得嗎?
在經歷如此徹底的神經系統重塑之後,毛毛蟲幼年時期學到的記憶,能否在蛹期大融化中倖存並帶到成蟲大腦中?
2008年,喬治城大學的生物學家道格拉斯·布萊キストン(Douglas Blackiston)與瑪莎·韋斯(Martha Weiss)在國際權威期刊《PLOS ONE》上發表了里程碑式的實證研究:
  flowchart LR
    subgraph MemoryExperiment ["煙草天蛾跨變態記憶實驗"]
        TrainLarva["5齡煙草天蛾幼蟲<br/>暴露於乙酸乙酯氣味並施加微弱電擊<br/>建立氣味厭惡條件反射"] --> Metamorphosis["蛹化與全身變態重塑<br/>(中腸排空、突觸大規模修剪)"]
        Metamorphosis --> TestAdult["羽化成蟲進入 Y 型選擇迷宮"]
        TestAdult --> Evidence["成蟲依然顯著規避幼蟲期電擊氣味<br/>(證實記憶信息成功跨越變態階段)"]
    end
研究人員訓練煙草天蛾(Manduca sexta)的高齡幼蟲,使其在聞到乙酸乙酯氣體時遭受溫和電擊,從而建立對該氣味的強迫性恐懼厭惡。經過完全化蛹和組織解體,羽化成蛾後,在Y型嗅覺選擇迷宮中,受訓個體依然表現出極其顯著的氣味逃避行為。
神經解剖學證實:昆蟲大腦的學習記憶中樞——蕈形體(Mushroom Bodies)的核心內生神經元肯揚細胞(Kenyon Cells)並沒有在蛹中死亡。雖然幼蟲期的軸突分支和樹突棘經歷了大規模的修剪與重布線,但儲存關鍵記憶痕跡的神經元支架完好保留並整合進了成蟲大腦,使成蟲獲得了繼承幼年生存經驗的演化優勢。
8. 演化發育生物學啟示:原若蟲假說與昆蟲生長調節劑
昆蟲是如何演化出如此複雜的變態機制的?現代 Evo-Devo 研究廣泛支持原若蟲假說(Pro-nymph Hypothesis):
- 祖先不完全變態昆蟲在卵內胚胎期經歷一段短暫的、表皮柔軟的原若蟲階段;
- 完全變態昆蟲的祖先突變使保幼激素提前分泌,導致胚胎在該階段提前孵化出殼——毛毛蟲本質上就是一隻在卵外自由活動、瘋狂吃喝的「遊走型胚胎」;
- 原本多次蛻皮生長的若蟲期被高度濃縮整合為一個單一的靜止階段——這就是蛹的真正起源。
現代應用:高選擇性昆蟲生長調節劑(IGR)
人類破解完全變態分子機制後,成功研製出針對害蟲內分泌系統的綠色農藥:
- 保幼激素擬似劑(如吡丙醚 Pyriproxyfen、滅幼寶 Methoprene):在孑孓或跳蚤幼蟲末期維持JH信號,徹底摧毀其化蛹羽化能力,高效滅蚊且對哺乳動物完全無毒;
- 蛻皮激素受體激動劑(如蟲酰肼 Tebufenozide):強制誘發農林害蟲幼蟲進行畸形蛻皮,使幼蟲口器卡死在舊頭殼中無法進食而餓死。
9. 結語:超越泥湯的生命工程學奇蹟
「毛毛蟲在蛹中徹底化成一灘泥」,既揭示了舊軀體自我犧牲的壯烈,又嚴重低估了生命設計的高超智慧。
幼蟲的肉體確實在程序性自溶中化為生化養分的海洋,但懸浮在這片海洋之中的成蟲原基,從未陷入無序。它們手握胚胎期就已寫好的宏偉藍圖,在激素信號的交響樂中,精準地將混沌轉化為秩序,將笨重的爬蟲重塑為翱翔於晴空的精靈。完全變態絕非毀滅,而是生命在演化長河中寫下的最壯麗的重生詩篇。