引言:地球上最宏大的分子化学引擎
地球表面生机勃勃的植被与海洋生态,全部维系于一个核心生物化学奇迹——光合作用(Photosynthesis)。
全球植物、藻类和蓝细菌每年吸收太阳辐射能,将超过1000亿吨无机二氧化碳($\text{CO}_2$)固定为糖类有机物,同时释放出等量的纯净氧气($\text{O}_2$)。其年生物能量转换功率高达约100太瓦($100\text{ TW}$),数十倍于全人类工业文明的总能耗。
  flowchart LR
    subgraph PhotosynthesisMacro["光合作用的两大反应阶段"]
        direction LR
        subgraph LightReaction["光反应 (类囊体膜)"]
            Sun["太阳光子 (hν)"] --> PSII["光系统II (裂解水)"]
            H2O["水分子 (2H2O)"] --> PSII
            PSII -->|释放氧气| O2["氧气 (O2)"]
            PSII -->|电子传递链 ETC| Cyt["细胞色素 b6f 与 PSI"]
            Cyt -->|质子驱动力 PMF| ATP_Syn["ATP合成酶"]
            ATP_Syn --> ATP["高能分子: ATP"]
            Cyt --> NADPH["还原力: NADPH"]
        end

        subgraph DarkReaction["暗反应 / 卡尔文循环 (基质)"]
            CO2["大气二氧化碳"] --> RuBisCO["RuBisCO催化碳同化"]
            ATP -.->|磷酸基与能量| RuBisCO
            NADPH -.->|氢与电子供体| RuBisCO
            RuBisCO --> Sugar["三碳糖 / 葡萄糖产物"]
        end
    end
人工光伏电池虽然光电效率可达20%,但常温水分解仍极度依赖贵金属催化剂。而植物叶绿体仅依靠地壳丰度极高的元素(锰、钙、铁、镁),在常温常压中性水溶液中就能裂解水,且光能捕获向反应中心的传递实现了接近100%的量子产率。
1. 叶绿体与类囊体膜的超分子结构
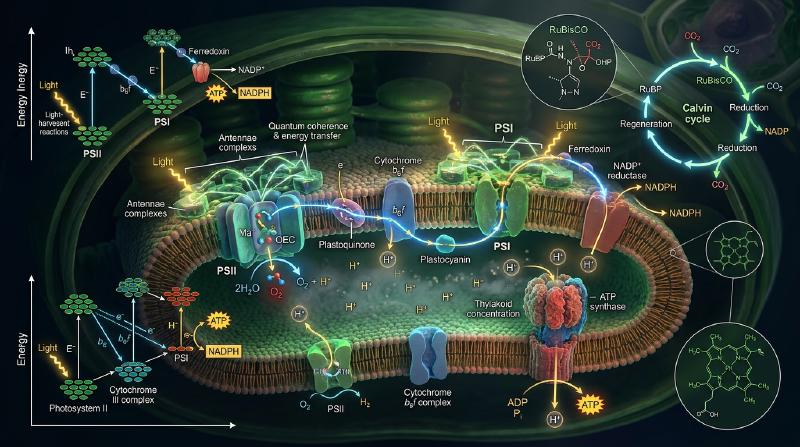
光合作用的高效性基于类囊体膜上的超分子蛋白质复合体空间分离:
- 光系统II(PSII):富集于密集的基粒类囊体叠层区(Appressed region);
- 光系统I(PSI):分布于暴露的基质类囊体非叠层区(Stroma lamellae);
- 细胞色素 $b_6f$ 复合体:均匀分布于叠层与非叠层区,充当氧化还原中继桥;
- $F_oF_1$-ATP合成酶:局限于非叠层区,因其巨大的 $F_1$ 催化头部(直径约 $10\text{ nm}$)无法塞入狭窄的基粒叠层间隙。
2. 量子生物学:激子能量传递与量子相干性
  flowchart TD
    subgraph ExcitonTransfer["激子传递机理"]
        Photon["吸收光子"] --> LHC["捕光天线复合体 (LHCII)"]
        LHC --> Exciton["弗兰克尔激子波包"]
        Exciton --> FRET["经典FRET (偶极偶极无规跳跃: R⁻⁶)"]
        Exciton --> Coherence["量子相干性 (多路径同时波态探索)"]
        Coherence --> RC["超快捕获至反应中心 P680 / P700"]
    end
2007年二维电子光谱实验证实:叶绿素分子密集排列(间距 $<1\text{ nm}$)使得电子轨道强耦合,激子以**量子力学叠加态(Quantum Coherence)**在天线复合体中同时探索多条退激路径,并在分子热振动辅助下(ENAQT),以波的方式在数十皮秒内近乎零损耗地汇入反应中心。
3. 光反应全貌:Z字型电子传递链与水裂解
  flowchart TD
    subgraph ZScheme["Zスキーム氧化还原电位梯"]
        direction TB
        P680["P680基态 (+1.25 V 生物最强氧化剂)"]
        P680_star["P680*激发态 (-0.8 V)"]
        Pheo["去镁叶绿素 (-0.6 V)"]
        PQ["质体醌池 (PQH2)"]
        Cytb6f["细胞色素 b6f (Q循环)"]
        PC["质体蓝素 (+0.37 V)"]
        P700["P700基态 (+0.45 V)"]
        P700_star["P700*激发态 (-1.2 V)"]
        Fd["铁氧还蛋白 (-0.43 V)"]
        NADPH["NADPH产物 (-0.32 V)"]

        P680 -->|hν 680nm| P680_star --> Pheo --> PQ --> Cytb6f --> PC --> P700
        P700 -->|hν 700nm| P700_star --> Fd --> NADPH
    end
- P680阳离子自由基拥有高达 $+1.25\text{ V}$ 的超强氧化还原电位,是地球生物界唯一能撕裂水分子($+0.815\text{ V}$)的分子。
- 放氧复合体(OEC)与Kok的S状态时钟:OEC包含核心 $\text{Mn}_4\text{CaO}_5$ 歪斜椅型簇。每吸收一个光子升一级氧化态($S_0 \rightarrow S_1 \rightarrow S_2 \rightarrow S_3 \rightarrow S_4$),积蓄4个氧化当量后,一瞬间协同夺取两分子水中的4个电子,释放出 1分子 $\text{O}_2$ 和 4个质子:
4. 质子驱动力与ATP合成酶旋转马达
电子传递伴随质子跨膜泵入,使类囊体腔内呈酸性($\text{pH} \approx 5.5$),基质呈碱性($\text{pH} \approx 8.0$)。产生的质子驱动力为:
$$\Delta p = \Delta\Psi - \frac{2.303 R T}{F} \Delta\text{pH} \approx 200\text{ mV}$$质子经由 $F_oF_1$-ATP合成酶 回流:
- 质子穿过 $a$ 亚基半通道使 $c$ 环谷氨酸质子化,驱动 $c$ 环单向旋转;
- 轴向 $\gamma$ 亚基偏心旋转强迫 $\alpha_3\beta_3$ 催化头部发生 Open $\rightarrow$ Loose $\rightarrow$ Tight 构象转变,每转一圈稳定合成 3 分子 ATP,机械效率超过 90%。
5. 卡尔文循环与RuBisCO的光呼吸宿命
  flowchart TD
    subgraph CalvinCycle["卡尔文循环三阶段"]
        S1["第1阶段:碳同化 (RuBisCO催化 CO2 + RuBP -> 2 × 3-PGA)"]
        S2["第2阶段:还原 (消耗 6 ATP + 6 NADPH -> 生成 6 G3P)"]
        S3["第3阶段:RuBP再生 (5 G3P + 3 ATP -> 3 RuBP)"]

        S1 --> S2 --> S3 --> S1
        S2 --> Out["净产出:1分子 G3P (合成淀粉与蔗糖)"]
    end
RuBisCO的催化缺陷与光呼吸
地球上最丰富的酶 RuBisCO 进化于30亿年前的无氧高碳环境,无法严格区分 $\text{CO}_2$ 与 $\text{O}_2$。在现今富氧大气中,RuBisCO每4次反应就有1次发生加氧副反应,生成有害的2-磷酸乙醇酸,迫使植物启动跨三个细胞器的光呼吸(Photorespiration),白白损耗25%~40%的光合能量!
C4与CAM植物的进化反制
- C4植物(玉米、甘蔗):空间分离。叶肉细胞利用PEP羧化酶固定 $\text{CO}_2$,并在维管束鞘细胞中释放高浓度 $\text{CO}_2$,彻底抑制光呼吸。
- CAM植物(仙人掌、凤梨):时间分离。夜间气孔张开固定碳为苹果酸,白天关闭气孔保水并在强光下脱羧供卡尔文循环使用。
6. 地球生物圈与大氧化事件
24亿年前,蓝细菌释放的氧气与海洋二价铁反应沉淀出全球铁矿,随后氧气涌入大气引发**大氧化事件(GOE)**与全球冻结。残存生物演化出有氧呼吸,催生出臭氧层与真核多细胞生命的爆发。
结论
一叶落而知天下秋。每一片绿叶内部,量子相干性与多金属催化在此交织成宇宙最壮丽的能量转换交响乐。