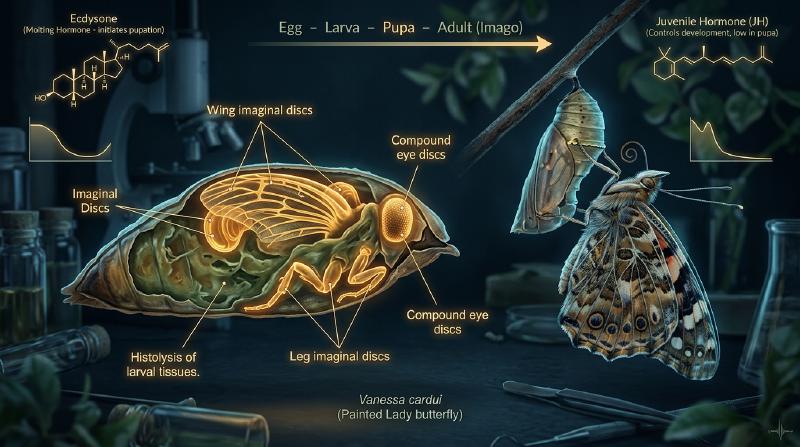
一条在植物叶片上疯狂啃食的肥硕毛毛虫,吐丝作茧或化为静止僵硬的蛹,数日之后,蛹壳破裂,一只拥有绚丽对称双翅的斑斓蝴蝶破茧而出——完全变态(Holometaboly)是地球生命演化史上最为震撼而充满诗意的生物学飞跃之一。
在公众的普遍认知中,流传着一个极其著名的说法:“毛毛虫在蛹壳里会彻底融化成一滩没有结构的肉汤,然后再重新从零组装成一只蝴蝶”。然而,现代发育生物学、分子遗传学以及微焦点X射线CT成像技术向我们揭示了一个更加精巧、更具工程美感的生命真相。
毛毛虫的幼虫组织确实经历了剧烈的组织崩解(Histolysis),数以亿计的幼虫细胞通过凋亡(Apoptosis)和自噬(Autophagy)进行程序性自溶。但蛹内绝非毫无秩序的混沌汤液。早在胚胎发育的最早期,毛毛虫体内就已经埋下了数对处于休眠状态的、高度特化的二倍体祖细胞团——成虫原基(Imaginal Discs)。
当幼虫器官自溶崩解并释放出海量氨基酸与脂质养分时,成虫原基吸收了这场生化洪流。在蜕皮激素与形态发生素浓度梯度的精密指引下,原基细胞发生爆发性有丝分裂,像折叠望远镜一般向外立体翻转展开,以令人惊叹的自组织能力重建出成虫的翅膀、复眼、触角与足部。
本文将深入分子内核,全方位剖析昆虫完全变态的内分泌跷跷板机制、万圣节基因簇、成虫原基的三维形态发生、记忆在变态过程中的跨阶段保留,以及昆虫生长调节剂在现代生物技术中的前沿应用。
1. 变态样式的宏观演化:完全变态为何能统治地球陆地?
现生昆虫纲(六足亚门)根据其变态发育模式,清晰地划分为三大类群:
  flowchart TD
    subgraph InsectMetamorphosis ["昆虫的三大发育模式"]
        Ametaboly["无变态 (Ametaboly)<br/>• 代表物种: 衣鱼、石蛃<br/>• 幼体形态与成虫基本一致<br/>• 仅通过持续蜕皮实现体型等比例增长"]
        Hemimetaboly["不完全变态 (Hemimetaboly)<br/>• 代表物种: 蝗虫、螳螂、蝉、蜻蜓<br/>• 无蛹期,若虫(Nymph)体外翅芽逐龄生长<br/>• 幼体与成体生态位重叠严重"]
        Holometaboly["完全变态 (Holometaboly)<br/>• 代表物种: 鞘翅目、鳞翅目、膜翅目、双翅目<br/>• 卵 → 幼虫 → 蛹 → 成虫 四阶段<br/>• 翅和附肢作为成虫原基在体内隐秘分化"]
    end
在地球上已知的所有动物物种中,超过60%属于完全变态昆虫(内生翅类: Endopterygota);而在昆虫纲内部,这一比例更高达85%以上。甲虫(鞘翅目)、蝶蛾(鳞翅目)、蜂蚁(膜翅目)与蚊蝇(双翅目)这四大超级多样性目全部属于完全变态类群。
彻底消除亲子世代资源竞争的生态位解耦
在不完全变态昆虫(如蝗虫)中,幼虫(若虫)和成虫长着完全相同的咀嚼式口器,生活在同一片草丛中,争夺完全相同的植物叶片。这种生态位的高度重叠带来了巨大的种内竞争压力。
而完全变态则创造性地打破了这一瓶颈,实现了生态学上的极致分工:
- 幼虫(毛毛虫、蛆、蛴螬):移动迟缓,专职摄食,体内消化器官极度膨大,在几周内将体重暴增数千倍,是一台纯粹的“生物量积累与营养储存机器”;
- 成虫(蝴蝶、蛾、蜜蜂):放弃了沉重的幼虫消化道,演化出虹吸式口吻吸食花蜜,拥有广阔的复眼与强悍的飞行翅膀,是一台专职“基因扩散、迁徙与有性生殖机器”。
幼虫与成虫在食物来源、生活空间与行为模式上实现了100%的物理隔离,消除了亲子世代之间的资源内耗,从而推动完全变态昆虫征服了陆地生态系统的每一个角落。
2. 内分泌调控网络:保幼激素(JH)与蜕皮激素(20E)的生化跷跷板
昆虫生命史中的每一次蜕皮、化蛹与羽化,均由两大脑内分泌激素的浓度比率精准驱动:保幼激素(Juvenile Hormone: JH)与类固醇激素20-羟基蜕皮酮(20-Hydroxyecdysone: 20E)。
  flowchart TD
    subgraph EndocrineAxis ["昆虫变态的内分泌控制轴"]
        Brain["脑部神经分泌细胞"] -->|神经肽脉冲| PTTH["促前胸腺激素 (PTTH)"]
        PTTH --> ProthoracicGland["前胸腺 (Prothoracic Gland)"]
        ProthoracicGland -->|类固醇前体| Ecdysone["蜕皮酮 (Ecdysone)"]
        Ecdysone --> PeripheralTissues["外周组织 (脂肪体) 羟化"]
        PeripheralTissues --> Active20E["活性 20-羟基蜕皮酮 (20E)"]

        CA["咽侧体 (Corpora Allata)"] -->|倍半萜类分泌| JH["保幼激素 (Juvenile Hormone: JH)"]

        Active20E --> MetamorphosisSwitch{"蜕皮期 JH / 20E 比值"}
        JH --> MetamorphosisSwitch

        MetamorphosisSwitch -->|高 JH + 20E 脉冲| LarvalMolt["幼虫-幼虫蜕皮 (维持幼体生长)"]
        MetamorphosisSwitch -->|痕量 JH + 20E 脉冲| PupalCommitment["化蛹决定蜕皮 (变态启动)"]
        MetamorphosisSwitch -->|零 JH + 20E 脉冲| AdultEclosion["成虫分化与羽化"]
    end
万圣节基因簇(Halloween Genes)与蜕皮激素合成
前胸腺将膳食胆固醇转化为活性20E的过程,由一系列高度保守的细胞色素P450单加氧酶严格把控。由于突变体胚胎角质层发育畸形宛如万圣节幽灵面具,这些催化酶基因被形象地命名为万圣节基因簇:
- Neverland (Nvd):在起始端催化胆固醇转化为7-脱氢胆固醇;
- Spook (CYP307A1):催化未知的“黑匣子”限速氧化步骤生成二酮二醇前体;
- Phantom (CYP306A1):催化C-25位羟化生成酮三醇;
- Disembodied (CYP302A1):催化C-22位羟化生成2-脱氧蜕皮酮;
- Shadow (CYP315A1):在前胸腺内完成C-2位羟化合成蜕皮酮并分泌入血;
- Shade (CYP314A1):在外周组织(特别是脂肪体)中催化C-20位羟化,最终产生活性极高的20-羟基蜕皮酮(20E)。
保幼激素、Kr-h1与Broad-Complex的分子制动
保幼激素(JH)由咽侧体合成,其核心作用是发出“维持幼虫状态”的遗传指令:
- JH分子穿透细胞膜,结合细胞核内的bHLH-PAS家族受体Met(Methoprene-tolerant)与Gce(Germ cell-expressed)。
- 活化的Met/Gce复合物直接驱动锌指转录因子Krüppel-homolog 1(Kr-h1)的高水平表达。
- Kr-h1是化蛹的主制动阀:它牢牢结合在化蛹关键主控基因Broad-Complex(BR-C)的启动子上,强力阻断其转录。
- 在终龄幼虫末期,咽侧体停产JH,血淋巴中的JH酯酶和环氧化物水解酶迅速清除残留JH。在JH彻底归零后,新一轮20E脉冲来临,解除Kr-h1的抑制,促使BR-C爆发性表达,正式敲开化蛹与成虫原基启动的闸门。
3. 成虫原基(Imaginal Discs):藏于毛虫体内的隐形蓝图
成虫原基并非幼虫进入蛹期后临时凭空生成的组织,而是在卵内胚胎发生的极早期,由十几个到几十个外胚层细胞预先决定(Determination)而成的独立细胞集团。
  flowchart LR
    subgraph ImaginalDiscMapping ["成虫原基与成虫器官的对应关系"]
        EyeAntenna["复眼-触角原基 (Eye-Antennal Disc)"] --> AdultHead["成虫复眼、单眼、触角与头部骨片"]
        WingDisc["中胸翅原基 (Wing Disc)"] --> AdultWing["成虫前翅与中胸背板 (Notum)"]
        HaltereDisc["后胸原基 (Haltere Disc)"] --> AdultHaltere["后翅 (蝴蝶) 或 平衡棒 (苍蝇)"]
        LegDiscs["三对足原基 (Leg Discs T1-T3)"] --> AdultLegs["成虫的三对步足"]
        GenitalDisc["生殖原基 (Genital Disc)"] --> AdultGenitalia["交尾器、产卵瓣与内外生殖管道"]
    end
二倍体静止与幼虫多倍体化的分野
幼虫在疯狂啃食生长的过程中,其绝大多数体细胞(表皮、中肠、唾液腺)并不通过正常的细胞分裂增殖,而是进行核内DNA复制(Endoreplication / 多倍体化),细胞核体积增大几十甚至上百倍以支撑海量蛋白质合成。
然而,成虫原基细胞完全拒绝多倍体化。它们始终保持纯正的二倍体状态(Diploid),通过受控的有丝分裂静静增殖。原基上皮向内凹陷,形成悬挂在体壁内侧、浸泡在血淋巴中的囊袋状单层上皮结构。例如,在果蝇终龄幼虫体内,单个翅原基已从最初的几十个祖细胞分裂壮大至约50,000个细胞。
伸缩望远镜般的同心折叠几何学
成虫原基的上皮层极其致密地折叠成同心褶皱。以足原基为例,它就像一架收拢紧缩的便携式伸缩望远镜:
- 原基中心的最深处,决定了未来步足的最末端——跗节和爪;
- 外围一圈圈的同心环,依次对应胫节、股节、转节与基节。 一旦变态信号触发,折叠的上皮层像伞面一般向外翻转伸长(Eversion),短短数小时内就能构建出修长的关节肢体。
4. 空间坐标体系:形态发生素浓度梯度的笛卡尔编码
微小的上皮平面如何知道何处长出翅脉、何处生出翅缘刚毛?发育生物学通过成虫原基确立了经典的形态发生素浓度梯度(Morphogen Gradient)理论。
  flowchart TD
    subgraph CoordinateSystem ["翅原基的正交空间坐标系建立"]
        APAxis["前后轴 (A/P) 划分<br/>• 后部细胞表达 Engrailed (En)<br/>• 隔室分界处分泌 Hedgehog (Hh)<br/>• Hh 诱导 Decapentaplegic (Dpp) 跨区长距离扩散梯度"]
        DVAxis["背腹轴 (D/V) 划分<br/>• 背侧细胞表达 Apterous (Ap)<br/>• 边界激活 Notch,分泌 Wingless (Wg) 梯度<br/>• 精准确立翅缘 (Wing Margin)"]
        PDAxis["近远轴 (P/D) 展开<br/>• Dpp 与 Wg 正交相交的极值点确立翅尖 (Wing Tip)<br/>• 启动 Distal-less 与 Vestigial 级联"]
        APAxis --> PositionalGrid["2D 二维极坐标分子地址编码"]
        DVAxis --> PositionalGrid
        PositionalGrid --> PDAxis
    end
- 前后轴(A/P)划分:后部细胞表达转录因子Engrailed(En),促使细胞分泌短程信号分子Hedgehog(Hh)。Hh跨越边界扩散至前部细胞,激活BMP通路长程形态发生素Decapentaplegic(Dpp)的合成。Dpp双向扩散形成的坡度赋予细胞前后方向的位置信息。
- 背腹轴(D/V)划分:背侧细胞特异表达LIM同源盒转录因子Apterous(Ap)。在背腹交界面处,Notch信号被激活并诱导Wnt家族形态发生素Wingless(Wg)的线性分泌,精确锁定未来翅的外缘轮廓。
- 坐标交汇与三维展开:Dpp与Wg浓度梯度的垂直正交交汇点,就是未来翅膀的最远端(翅尖)。每个细胞读取体内的形态发生素浓度组合,如同读取GPS地理坐标,准确激活对应的结构基因。
5. 蛹内大解体:组织崩解(Histolysis)与营养循环
在静止不动的蛹壳内部,发生着动物界最剧烈的组织大清洗。
“毛毛虫化成一滩烂泥”在细胞层面上是千真万确的事实——这就是组织崩解(Histolysis)。
  sequenceDiagram
    autonumber
    participant LarvalOrgans as 幼虫组织 (中肠, 幼虫肌肉, 脂肪体)
    participant Caspases as 20E脉冲 & 胱天蛋白酶级联
    participant Phagocytes as 血淋巴吞噬细胞 (巨噬细胞)
    participant ImaginalDiscs as 成虫原基 (翅, 脚, 复眼)

    Note over LarvalOrgans,ImaginalDiscs: 化蛹启动:JH归零,高浓度20E脉冲来临
    Caspases->>LarvalOrgans: 诱导 reaper, hid, grim → 点燃凋亡与自噬程序
    LarvalOrgans->>LarvalOrgans: 溶酶体组织蛋白酶活化,肌原纤维与细胞骨架彻底水解
    Phagocytes->>LarvalOrgans: 吞噬并消化细胞碎片与凋亡小体
    Phagocytes->>ImaginalDiscs: 将分解后的氨基酸、糖类与脂质释放入血淋巴
    ImaginalDiscs->>ImaginalDiscs: 原基细胞吸收充足养料,爆发性分裂重构成虫身体
幼虫器官的程序性自我毁灭
- 巨大中肠的脱落:幼虫用于消化粗纤维的大型中肠上皮发生同步凋亡,整体缩拢脱落并排入消化道管腔,形成成虫羽化后排出的第一团代谢废物——胎粪(Meconium);由成虫肠祖细胞重建全新轻便的成虫肠道。
- 纵走爬行肌肉的液化:负责毛毛虫蠕动爬行的粗壮肌肉群,在泛素-蛋白酶体系统和组织蛋白酶(Cathepsins)的疯狂切割下解体液化,释放出巨量游离氨基酸。
- 成虫原基为何能免遭融化?:幼虫细胞与原基细胞在面对同样的20E刺激时,其基因线路呈现相反的逻辑。幼虫细胞内的EcR受体直接打开凋亡基因(reaper, hid, grim)的启动子;而在成虫原基细胞中,多梳家族蛋白(PcG)严密沉默了凋亡位点,20E转而激活细胞周期素与生长因子,使成虫原基在营养的狂潮中疯狂生长。
6. 成虫形态发生与翅膀纳米光学工程
当成虫器官完成翻转展开后,最终的羽化过程展示了生物物理学令人惊叹的力学与光学控制。
  flowchart TD
    subgraph EclosionBiophysics ["羽化与翅膀硬化成型过程"]
        Hydraulic["1. 血淋巴液压泵驱动<br/>• 腹部肌肉强力节律收缩<br/>• 将血淋巴强行泵入微细翅脉中<br/>• 褶皱的翅片在流体静压下充气展开"]
        Bursicon["2. 羽化激素与膨翅素 (Bursicon) 释放<br/>• 神经分泌细胞向血液释放神经肽 Bursicon<br/>• 结合表皮细胞 LGR4/5 受体,激活 cAMP 通路"]
        Sclerotization["3. 几丁质交联与鞣化硬化<br/>• 合成 NADA 与 NBAD,氧化为高活性醌类<br/>• 醌类使表皮蛋白与几丁质纤维共价交联硬化"]
        Hydraulic --> Bursicon --> Sclerotization
    end
蝶翅鳞片的微纳光子晶体架构
蝴蝶翅膀上的斑斓色彩,特别是大蓝闪蝶(Morpho)那种永不褪色的金属光泽,并非源于化学色素,而是极致的物理结构色(Structural Color):
- 单个表皮前体细胞经不对称分裂,分化出插座细胞(Tormogen)与产鳞细胞(Trichogen);
- 产鳞细胞向外伸出充满肌动蛋白微丝骨架的扁平突起,在其表面沉积几丁质外骨骼;
- 几丁质薄层自组织排列成高度精密的“圣诞树”状微观棚架结构,层间距精确维持在约 140 纳米;
- 当白光射入时,周期性纳米薄层发生多光束干涉,波长约 450 nm 的蓝光产生极强的相长干涉反射,其他波长的光则相互抵消,造就了生物光学史上最璀璨的杰作。
7. 跨越变态的记忆保留:毛毛虫的经历蝶会记得吗?
在经历如此彻底的神经系统重塑之后,毛毛虫幼年时期学到的记忆,能否在蛹期大融化中幸存并带到成虫大脑中?
2008年,乔治城大学的生物学家道格拉斯·布莱キストン(Douglas Blackiston)与玛莎·韦斯(Martha Weiss)在国际权威期刊《PLOS ONE》上发表了里程碑式的实证研究:
  flowchart LR
    subgraph MemoryExperiment ["烟草天蛾跨变态记忆实验"]
        TrainLarva["5龄烟草天蛾幼虫<br/>暴露于乙酸乙酯气味并施加微弱电击<br/>建立气味厌恶条件反射"] --> Metamorphosis["蛹化与全身变态重塑<br/>(中肠排空、突触大规模修剪)"]
        Metamorphosis --> TestAdult["羽化成虫进入 Y 型选择迷宫"]
        TestAdult --> Evidence["成虫依然显著规避幼虫期电击气味<br/>(证实记忆信息成功跨越变态阶段)"]
    end
研究人员训练烟草天蛾(Manduca sexta)的高龄幼虫,使其在闻到乙酸乙酯气体时遭受温和电击,从而建立对该气味的强迫性恐惧厌恶。经过完全化蛹和组织解体,羽化成蛾后,在Y型嗅觉选择迷宫中,受训个体依然表现出极其显著的气味逃避行为。
神经解剖学证实:昆虫大脑的学习记忆中枢——蕈形体(Mushroom Bodies)的核心内生神经元肯扬细胞(Kenyon Cells)并没有在蛹中死亡。虽然幼虫期的轴突分支和树突棘经历了大规模的修剪与重布线,但储存关键记忆痕迹的神经元支架完好保留并整合进了成虫大脑,使成虫获得了继承幼年生存经验的演化优势。
8. 演化发育生物学启示:原若虫假说与昆虫生长调节剂
昆虫是如何演化出如此复杂的变态机制的?现代 Evo-Devo 研究广泛支持原若虫假说(Pro-nymph Hypothesis):
- 祖先不完全变态昆虫在卵内胚胎期经历一段短暂的、表皮柔软的原若虫阶段;
- 完全变态昆虫的祖先突变使保幼激素提前分泌,导致胚胎在该阶段提前孵化出壳——毛毛虫本质上就是一只在卵外自由活动、疯狂吃喝的“游走型胚胎”;
- 原本多次蜕皮生长的若虫期被高度浓缩整合为一个单一的静止阶段——这就是蛹的真正起源。
现代应用:高选择性昆虫生长调节剂(IGR)
人类破解完全变态分子机制后,成功研制出针对害虫内分泌系统的绿色农药:
- 保幼激素拟似剂(如吡丙醚 Pyriproxyfen、灭幼宝 Methoprene):在孑孓或跳蚤幼虫末期维持JH信号,彻底摧毁其化蛹羽化能力,高效灭蚊且对哺乳动物完全无毒;
- 蜕皮激素受体激动剂(如虫酰肼 Tebufenozide):强制诱发农林害虫幼虫进行畸形蜕皮,使幼虫口器卡死在旧头壳中无法进食而饿死。
9. 结语:超越泥汤的生命工程学奇迹
“毛毛虫在蛹中彻底化成一滩泥”,既揭示了旧躯体自我牺牲的壮烈,又严重低估了生命设计的高超智慧。
幼虫的肉体确实在程序性自溶中化为生化养分的海洋,但悬浮在这片海洋之中的成虫原基,从未陷入无序。它们手握胚胎期就已写好的宏伟蓝图,在激素信号的交响乐中,精准地将混沌转化为秩序,将笨重的爬虫重塑为翱翔于晴空的精灵。完全变态绝非毁灭,而是生命在演化长河中写下的最壮丽的重生诗篇。