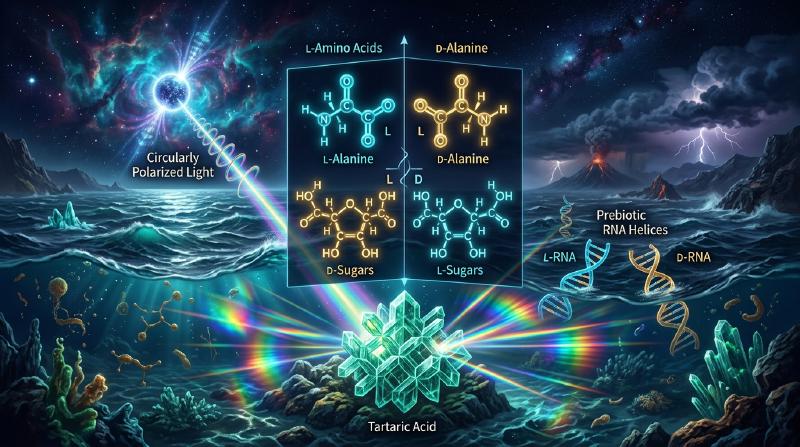
Посмотрите на свои руки. Ваша левая и правая ладони состоят из одних и тех же анатомических элементов: пять пальцев, одинаковые фаланги, равные пропорции. Однако, как бы вы ни поворачивали левую руку в трехмерном пространстве, вы никогда не сможете идеально совместить её с правой рукой так, чтобы ладони смотрели в одном направлении. Они соотносятся как зеркальные отражения, несовместимые в пространстве. В химии и физике это фундаментальное геометрическое свойство называется хиральностью (от древнегреческого слова cheir — «рука»).
Когда химик синтезирует хиральные соединения в лаборатории из нехирального исходного сырья, законы термодинамики неумолимо создают равную смесь: 50% правых и 50% левых молекул. Такая эквимолярная смесь называется рацематом и не вращает плоскость поляризации света.
Тем не менее биосфера Земли на протяжении 3,8 миллиарда лет демонстрирует абсолютное нарушение этой симметрии:
- Белки: Все ферменты и структурные белки живых организмов построены исключительно из L-аминокислот (левовращающих).
- Нуклеиновые кислоты: Углеводный остов ДНК и РНК состоит исключительно из D-сахаров (D-рибозы и D-дезоксирибозы, правовращающих).
Это свойство называется биологической гомохиральностью. Почему первичная биохимия Земли выбрала именно L-аминокислоты и D-сахара, а не обратную зеркальную конфигурацию?
  flowchart TD
    subgraph CHIRALITY_RU ["Основы хиральности и биологической асимметрии"]
        direction TB
        MOL["Хиральная молекула (асимметричный углеродный атом)"] --> MIRROR["Зеркальное отражение"]
        MIRROR --> ENANT["Пара энантиомеров (несовместимые зеркальные антиподы)"]

        ENANT --> PROP1["Идентичные физические свойства (температура кипения, плотность)"]
        ENANT --> PROP2["Оптическая активность: вращение поляризованного света в противоположные стороны (+ / -)"]
        ENANT --> PROP3["Хиральное распознавание: различные фармакологические эффекты и запахи"]

        ENANT --> HOMO["Земная биосфера: абсолютная 100% гомохиральность (L-аминокислоты и D-сахара)"]
    end
1. Рождение стереохимии: Луи Пастер и кристаллы винной кислоты
Открытие молекулярной хиральности произошло в 1848 году благодаря гению 26-летнего французского химика Луи Пастера. В то время исследователи безуспешно пытались объяснить парадокс винной кислоты. Природная винная кислота, осаждавшаяся на стенках винных бочек, поворачивала плоскость поляризованного света вправо (правовращающая, $(+)$). Синтетическая «виноградная кислота» с тем же химическим составом была оптически неактивной.
Пастер кристаллизовал натриево-аммониевую соль виноградной кислоты при температуре ниже 28 °C. Разглядывая кристаллы под микроскопом, он заметил поразительную деталь: грани кристаллов обладали гемиэдрической асимметрией двух зеркально противоположных типов.
С помощью пинцета и увеличительного стекла Пастер вручную рассортировал кристаллы на две группы:
- Раствор кристаллов первого типа вращал поляризованный свет по часовой стрелке ($+$).
- Раствор зеркальных кристаллов вращал свет на точно такой же угол против часовой стрелки ($-$).
- Смешение двух растворов в равных долях приводило к полной взаимной нейтрализации вращения — оптически неактивному рацемату.
Пастер сделал вывод: внешняя кристаллическая асимметрия обусловлена невидимой пространственной асимметрией самих молекул. Пастер вдохновенно утверждал: «Асимметрия — это великая граница, разделяющая неживую материю и жизнь».
| |
2. Модель трехточечного взаимодействия и трагедия талидомида
Почему живой организм столь кардинально различает молекулы, которые физически идентичны по массе и температуре плавления? Причина кроется в хиральности биологических рецепторов. Поскольку клеточные белки состоят из L-аминокислот, их связывающие карманы представляют собой трехмерные асимметричные матрицы.
Модель трехточечного связывания Иссона и Стедмана (1933) показывает: чтобы вызвать биологический отклик, три функциональные группы молекулы должны одновременно соединиться с тремя комплементарными сайтами рецептора. Зеркальный энантиомер может сопоставить максимум две группы из трех; третья неизбежно оказывается направлена в пустоту или вызывает стерический конфликт.
  flowchart LR
    subgraph THREE_POINT_RU ["Трехточечная модель взаимодействия"]
        direction TB
        REC["Хиральный рецептор (сайты A, B, C)"]
        ENANT_R["(R)-энантиомер: идеальное совпадение всех 3 групп"] -->|Специфический физиологический сигнал| REC
        ENANT_S["(S)-энантиомер: пространственное несовпадение третьей группы"] -->|Отсутствие эффекта или токсичность| REC
    end
Хиральные запахи
- (R)-(-)-карвон связывается с обонятельными рецепторами и воспринимается как свежий аромат кудрявой мяты.
- (S)-(+)-карвон активирует другие сигнальные пути и пахнет тмином.
- (R)-(+)-лимонен пахнет сочным апельсином, тогда как (S)-(-)-лимонен имеет резкий запах скипидара и сосны.
Талидомидовая катастрофа и белок цереблон
Самым мрачным уроком пренебрежения стереохимией стала катастрофа с препаратом талидомид на рубеже 1950–60-х годов. Назначение рацемической смеси беременным женщинам для купирования токсикоза привело к рождению более 10 000 детей с тяжелейшими пороками развития конечностей (фокомелией).
Современная структурная биология установила:
- (R)-энантиомер оказывает мягкое седативное действие и безопасен для плода.
- (S)-энантиомер связывается с белком Цереблоном (CRBN) — компонентом убиквитинлигазного комплекса E3. Это приводит к преждевременной деградации транскрипционного фактора SALL4, регулирующего рост зачатков конечностей эмбриона.
Даже использование исключительно чистого (R)-энантиомера не предотвратило бы трагедию: в крови человека при pH 7,4 водород у хирального центра подвергается спонтанной кето-енольной таутомерии, приводя к полной рацемизации in vivo всего за 4–5 часов.
3. Зачем жизни нужна гомохиральность? Биофизическая необходимость
Могла ли примитивная протобиология функционировать на основе гетерохиральной смеси L- и D-аминокислот? Биофизика дает категоричный ответ: нет.
  flowchart TD
    subgraph RAMA_RU ["Гомохиральность и укладка макромолекул"]
        direction TB
        HOMO_PROT["100% гомохиральный L-полипептид"] --> HELIX["Стабильная правозакрученная альфа-спираль (3.6 остатка на виток)"]
        HOMO_PROT --> SHEET["Регулярный бета-лист с плотной сетью H-связей"]
        HELIX --> ENZ["Функциональная трехмерная третичная структура фермента"]

        HETERO_PROT["Гетерохиральный полипептид (случайная смесь L/D)"] --> CLASH["Стерические запреты на карте Рамачандрана"]
        HETERO_PROT --> CHAOS["Беспорядочный клубок (Random Coil) без каталитического центра"]
        CHAOS --> DEAD["Полная потеря биокаталитической активности"]
    end
Карта Рамачандрана и альфа-спирали
Конформация полипептидной цепи определяется двугранными углами $\phi$ (фи) и $\psi$ (пси). На карте Рамачандрана L-аминокислоты формируют устойчивую область минимальной энергии для правозакрученной $\alpha$-спирали, удерживаемой водородными связями между карбонилом остатка $i$ и амидной группой остатка $i+4$. Внедрение даже одной D-аминокислоты вызывает катастрофическое стерическое отталкивание боковой цепи, разрушая регулярность водородных мостиков. Без жестких вторичных структур ферменты теряют избирательность.
Хиральное перекрестное ингибирование в РНК
В опытах Лесли Оргела по репликации РНК без участия ферментов было открыто явление хирального перекрестного ингибирования (Chiral Cross-Inhibition). Если матрица состоит из чистой D-РНК, а в растворе присутствуют мономеры L-нуклеотидов, они присоединяются к растущей цепи, но из-за неверной геометрии блокируют присоединение следующего звена. Процесс репликации необратимо обрывается. Следовательно, достижение оптической чистоты было абсолютным пререквизитом для зарождения генетического кода.
4. Происхождение исходной асимметрии: космический и физический след
Как возник исходный перевес в пользу L-аминокислот и D-сахаров на первобытной Земле? Современная наука рассматривает две главные концепции:
  flowchart TD
    subgraph ORIGIN_RU ["Гипотезы первичного нарушения симметрии"]
        direction TB
        ASTRO["Астрофизика: циркулярно-поляризованный ультрафиолет (CPL)"] --> METEORITES["Асимметричный фотолиз -> избыток L-изомеров 2-18% в метеорите Мерчисон"]

        WEAK["Физика элементарных частиц: нарушение четности в слабых взаимодействиях (Z-бозон)"] --> PVED["Квантовая разность энергий (PVED ~ 10^-14 Дж/моль) в пользу L-форм"]

        MINERALS["Геохимия: хиральные минеральные поверхности (кварц, кальцит)"] --> SURF_ADS["Селективная адсорбция на кристаллах"]

        METEORITES --> AMPLI["Автокаталитическое усиление (модель Франка, реакция Соаи)"]
        PVED --> AMPLI
        SURF_ADS --> AMPLI
        AMPLI --> FINAL_RU["100% биологическая гомохиральность"]
    end
Космическая гипотеза: Поляризованный свет в звездных колыбелях
В 1969 году в Австралии упал углистый хондрит Мерчисон. Исследования показали наличие более 70 аминокислот. Непротеиногенные аминокислоты, такие как изовалин (не способные к рацемизации), содержали устойчивый энантиомерный избыток L-формы от 2% до 18%.
В областях звездообразования излучение рассеивается на частицах межзвездной пыли, выстроенных магнитным полем галактики, генерируя циркулярно-поляризованный свет (CPL). Фотолиз под действием CPL селективно разрушает один энантиомер быстрее другого, создавая устойчивый перевес L-аминокислот, доставленных на Землю кометами и метеоритами.
Физическая гипотеза: Нарушение четности в слабом взаимодействии
$$\Delta E_{\text{PVED}} \approx 10^{-14} \text{ – } 10^{-16} \, \text{Дж/моль}$$В неравновесных открытых системах эта микроскопическая константа могла служить катализатором глобальной фазовой бифуркации.
5. Механизмы нелинейного усиления: Модель Франка и реакция Соаи
Первичного избытка в несколько процентов недостаточно для биогенеза. Требовался динамический механизм, способный довести микроскопический перекос до абсолютных 100%.
Математическая модель Франка (1953)
Британский физик Фредерик Чарльз Франк предложил кинетическую схему, основанную на двух постулатах:
- Асимметричный автокатализ: каждый энантиомер катализирует собственное воспроизводство ($A + L \rightarrow 2L$).
- Взаимное уничтожение (Mutual Antagonism): при встрече молекулы L и D необратимо образуют неактивный димер ($L + D \rightarrow LD$).
Рацемическое состояние ($\Delta = 0$) нестабильно. Малейшая случайная флуктуация приводит к лавинообразному подавлению меньшинства и абсолютной монополии доминирующего энантиомера.
  flowchart LR
    subgraph FRANK_RU ["Кинетика модели Франка"]
        direction TB
        A["Нехиральный предшественник A"] -->|Автокатализ L| 2L["2 L-энантиомера"]
        A -->|Автокатализ D| 2D["2 D-энантиомера"]
        2L -.->|Взаимная нейтрализация| DIMER["Неактивный гетерохиральный димер (L-D)"]
        2D -.->|Взаимная нейтрализация| DIMER
    end
Реакция Соаи: Экспериментальное подтверждение
В 1995 году японский химик Кэнсо Соаи впервые реализовал схему Франка на практике. При алкилировании пиримидин-5-карбальдегидов диизопропилцинком образующийся хиральный алкоголят цинка катализирует собственный синтез. При добавлении затравочного энантиомера с избытком всего $0{,}00005\%$ ee (50 ppb) реакционная система в ходе последовательных циклов самопроизвольно увеличивает оптическую чистоту продукта до более чем $99{,}5\%$ ee!
6. Синтетическая биология: Перспективы и угрозы «Зеркальной жизни»
Что произойдет, если ученые создадут полноценную живую клетку, работающую целиком на D-аминокислотах и L-сахарах?
Современное состояние разработок
Команды исследователей под руководством Тин Чжу (Университет Цинхуа) синтезировали функциональные Д-полимеразы, способные реплицировать L-ДНК и транскрибировать L-РНК.
Практическая польза и глобальные биориски
- Терапевтический потенциал: Зеркальные молекулы (шпигельмеры — аптамеры L-РНК) и D-пептиды не распознаются ферментами человеческого организма и обладают фантастической стабильностью в кровотоке, открывая новую эру в лечении рака.
- Экологическая угроза: Автономная зеркальная бактерия была бы абсолютно невидима для адаптивного и врожденного иммунитета млекопитающих и устойчива к атакам бактериофагов. Попадание такой формы жизни в дикую природу чревато неконтролируемым поглощением ресурсов и коллапсом биосферы.
Заключение
Гомохиральность живого мира — это не прихоть эволюции, а фундамент геометрии жизни. Разгадка тайны ее происхождения объединяет квантовую физику, космическую астрохимию и молекулярную биологию, напоминая о глубоком единстве законов Вселенной.