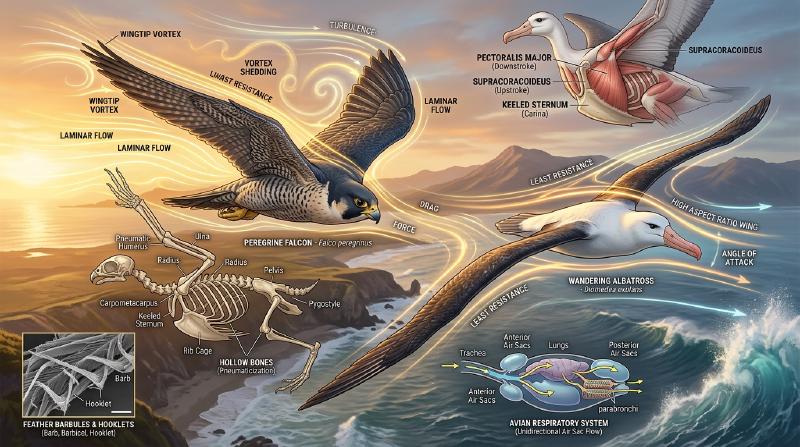
Парит ли беркут в восходящих термических потоках, пикирует ли сапсан на скорости свыше 380 км/ч, чтобы поразить добычу, или странствующий альбатрос годами бороздит штормовые просторы Южного океана, не сделав ни единого взмаха крыльями — птицы представляют собой совершенный шедевр природного полета.
В то время как пилотируемой авиации человека едва исполнилось столетие, птицы — единственные ныне живущие потомки тероподных динозавров — начали завоевание воздушного океана еще в юрском периоде более 150 миллионов лет назад. Они достигли маневренности, адаптивности и энергетической эффективности, превосходящих самые совершенные истребители и беспилотники.
Полет птиц — это вовсе не примитивные «взмахи крыльями». Это гармоничный ансамбль биологической инженерии: пневматизированный трубчатый скелет с внутренними ферменными распорками, уникальная мускульная система с костным блоком трехкостного канала, самовосстанавливающиеся перья с микрокрючками, дыхательная система с воздушными мешками и непрерывным однонаправленным током воздуха, а также виртуозное управление нестационарными вихрями передней кромки (LEV). В этом руководстве подробно рассмотрены аэродинамика, анатомия, дыхательная физиология и эволюционные корни птичьего полета.
1. Аэродинамика крыла: Подъемная сила, индуктивное сопротивление и удлинение
Чтобы удерживать в воздухе силу тяжести $W = mg$, крыло птицы должно создавать достаточную подъемную силу (Lift: $L$) и преодолевать аэродинамическое сопротивление.
Поперечное сечение птичьего крыла представляет собой изогнутый несимметричный аэродинамический профиль (Cambered Airfoil) с гладкой выпуклой верхней поверхностью и плоской или вогнутой нижней.
  flowchart TD
    subgraph AirfoilPhysics ["Циркуляция скорости и теорема Жуковского"]
        Inflow["Скорость набегающего потока v и угол атаки α"] --> Airfoil["Изогнутый несимметричный профиль"]
        Airfoil --> Circulation["Постулат Чаплыгина-Жуковского порождает циркуляцию: Γ"]
        Circulation --> KJTheorem["Теорема Жуковского: L' = ρ v Γ"]
        KJTheorem --> LiftEquation["Полная подъемная сила: L = 0.5 ρ v² S C_L"]
        Airfoil --> PressureDiff["Разность давлений по закону Бернулли и импульс скоса"]
    end
Теория циркуляции и формула подъемной силы
Согласно теореме Жуковского в механике сплошных сред, погонная подъемная сила $L'$ прямо пропорциональна плотности воздуха $\rho$, скорости набегающего потока $v$ и циркуляции присоединенного вихря $\Gamma$:
$$L' = \rho v \Gamma, \quad L = \frac{1}{2} \rho v^2 S C_L$$где $S$ — площадь крыла, а $C_L$ — коэффициент подъемной силы, зависящий от кривизны профиля и геометрического угла атаки $\alpha$.
Концевые вихри и индуктивное сопротивление
Плата за подъемную силу — индуктивное сопротивление (Induced Drag: $D_i$). Зона повышенного давления снизу перетекает через законцовку крыла в зону разрежения сверху, порождая мощные концевые вихри (Wingtip Vortices). Они индуцируют скос потока вниз (Downwash: $w$), отклоняющий вектор подъемной силы назад:
$$D_i = \frac{1}{2} \rho v^2 S C_{Di} = \frac{1}{2} \rho v^2 S \left(\frac{C_L^2}{\pi AR e}\right)$$где $AR = b^2 / S$ — удлинение крыла (Aspect Ratio), а $e$ — коэффициент Освальда. Уравнение математически доказывает, что индуктивное сопротивление обратно пропорционально удлинению крыла $AR$.
  flowchart LR
    subgraph WingMorphology ["Морфология крыльев и экологические ниши"]
        HighAR["Сверхдлинные узкие крылья<br/>(Альбатрос, Фрегат)<br/>AR > 15, минимальное индуктивное сопротивление"]
        Slotted["Широкие разрезные крылья<br/>(Орлы, Грифы, Аисты)<br/>Первостепенные маховые перья работают как винглеты"]
        Elliptical["Маневренные эллиптические крылья<br/>(Воробьи, Фазаны, Голуби)<br/>Мгновенный взлет среди ветвей деревьев"]
        Swept["Стреловидные скоростные крылья<br/>(Сапсан, Стрижи)<br/>Минимальное сопротивление при скоростных пике"]
    end
- Крылья сверхвысокого удлинения (Альбатрос): При $AR = 15 \dots 18$ концевые вихри практически нейтрализуются, обеспечивая аэродинамическое качество свыше 20 для беспосадочного парения над океаном;
- Разрезные крылья хищников (Орлы, Грифы): Первостепенные маховые перья веерообразно расправляются, образуя щели. Каждое перо служит независимым микро-винглетом, дробящим мощный концевой вихрь на систему быстро угасающих микровихрей;
- Придаточное крылышко (Alula): 3-5 перьев на первом пальце работают точно как предкрылок (Leading-Edge Slat) современных пассажирских самолетов. При заходе на посадку с большими углами атаки крылышко направляет высокоэнергетичный поток на верхнюю поверхность крыла, предотвращая срыв потока и отодвигая сваливание на 10°-15°.
2. Нестационарная гидродинамика машущего полета и вихри передней кромки
Самолет разделяет создание подъемной силы (неподвижное крыло) и тяги (двигатель). Птица же должна создавать и подъемную силу, и тягу одновременно одной парой деформируемых крыльев.
  flowchart TD
    subgraph FlappingBiomechanics ["Биомеханика взмаха и мышечное управление"]
        Downstroke["Опускание крыла (Downstroke) - Рабочий ход<br/>• Большая грудная мышца мощно тянет плечевую кость вниз<br/>• Пронация профиля крыла вперед и вниз<br/>• Вектор аэродинамической силы направлен вперед-вверх: создает силу L и тягу T"]
        Upstroke["Подъем крыла (Upstroke) - Возвратный ход<br/>• Подключичная мышца поднимает крыло через блок трехкостного канала<br/>• Сгибание в суставах уменьшает лобовую площадь<br/>• Маховые перья приоткрываются подобно жалюзи для снижения сопротивления"]
        Downstroke --> Upstroke --> Downstroke
    end
Вихрь передней кромки (Leading-Edge Vortex: LEV)
В полете колибри и мелких певчих птиц при низких числах Рейнольдса квазистационарные аэродинамические теории не могут объяснить величину генерируемой подъемной силы. Эксперименты с лазерной анемометрией частиц (PIV) доказали, что птицы используют нестационарный аэродинамический механизм — вихри передней кромки (LEV).
При резком ускоренном опускании крыла с большим углом атаки поток срывается с передней кромки и сворачивается в компактный низконапорный вихрь, удерживаемый над верхней поверхностью. Этот вихрь удваивает мгновенный коэффициент подъемной силы $C_L$, не вызывая классического срыва потока, так как полувзмах завершается до разрушения вихревой структуры.
Механизм «хлопка и раскрытия» Вейс-Фога (Clap and Fling)
При резком вертикальном старте с земли голуби смыкают крылья за спиной (хлопок — Clap), после чего резко распахивают их передние кромки (Fling). Воздух, устремляющийся в раскрывающийся зазор, мгновенно генерирует мощную циркуляцию вокруг крыльев еще до начала их поступательного движения, сообщая птице гигантский стартовый импульс.
3. Динамическое парение: Извлечение энергии ветра альбатросом
Странствующий альбатрос размахом крыльев до 3,5 метров преодолевает тысячи километров над Южным океаном без единого взмаха крыльев благодаря динамическому парению (Dynamic Soaring).
Его двигателем служат не восходящие теплые потоки, а вертикальный сдвиг горизонтального ветра (Wind Shear: $dU/dz$), возникающий из-за трения воздуха о поверхность волн.
  sequenceDiagram
    autonumber
    participant A as Траектория альбатроса
    participant U as Верхний слой сильного ветра (25 м/с)
    participant L as Зона затишья во впадине волны (5 м/с)
    A->>U: 1. Пикирование по ветру: Быстрый спуск, переводящий высоту и скорость ветра в огромную путевую скорость
    A->>L: 2. Разворот у поверхности волны: В закрытой гребнями зоне затишья разворот на 180° против ветра
    A->>U: 3. Подъем против ветра: Взмывая в слой ураганного ветра, птица резко увеличивает воздушную скорость (Airspeed) за счет градиента ветра
    A->>U: 4. Разворот на вершине: В верхней точке траектории снова ложится на ветер для повторения цикла
Уравнение изменения механической энергии показывает, что:
$$\frac{dE}{dt} = -D v_a - m g w_z - m v_{ax} \frac{dU}{dz} \dot{z}$$При правильной траектории слагаемое $-v_{ax} \dot{z}$ остается строго положительным, полностью компенсируя потери на сопротивление трения воздуха ($D v_a$). Кроме того, плечевой сустав альбатроса имеет специальное сухожильное замковое устройство (Shoulder-lock tendon), которое механически фиксирует крыло в расправленном положении без непрерывных мышечных энергозатрат.
4. Микроструктура перьев: Прочность и самовосстановление
Перья птиц представляют собой композиционный биоматериал с непревзойденной удельной прочностью и эластичностью.
  flowchart TD
    subgraph FeatherHierarchy ["Многоуровневая структура махового пера"]
        Shaft["Очин и стержень: Полая трубка высокой жесткости на изгиб"] --> Barbs["Бородки первого порядка: Параллельные ветви от стержня"]
        Barbs --> Barbules["Бородочки второго порядка: Проксимальные и дистальные микроволокна"]
        Barbules --> Hamuli["Крючочки (Hamuli): Прочно зацепляются за желобки соседних бородочек"]
        Hamuli --> Vane["Формирование сплошного упругого и воздухонепроницаемого опахала"]
        Vane --> SelfHealing["Мгновенное самовосстановление структуры при чистке клювом"]
    end
Застежка-молния на микрокрючках
Маховое перо содержит сотни тысяч бородочек и миллионы микроскопических крючочков (Hamuli). При критических перегрузках крючочки соскальзывают без разрыва кератина. Когда птица расправляет перья клювом, микрокрючочки автоматически вновь встают в пазы, как элементы застежки-липучки.
Бесшумный полет сов
Совы выработали три акустических механизма снижения аэродинамического шума:
- Гребневидные зубцы на передней кромке: Расщепляют крупные турбулентные вихри на микровихри;
- Мягкая бахрома на задней кромке: Сглаживает пульсации давления при сходе потока;
- Бархатистый пух на поверхности крыла: Поглощает звуки трения перьев друг о друга.
5. Скелет и мышцы: Предел биологического облегчения конструкций
Анатомия скелета птицы оптимизирована для достижения предельной прочности при минимальном весе.
  flowchart LR
    subgraph SkeletalAdaptation ["Адаптации птичьего скелета к полету"]
        Pneumatic["Пневматизированные полые кости<br/>Тонкие стенки с внутренними ферменными распорками"]
        Fusion["Срастания костей<br/>Сложный крестец (Synsacrum), пигостиль, вилочка (Furcula)"]
        Keel["Киль грудины (Carina / Keel)<br/>Огромная площадь для прикрепления маховых мышц"]
        Triosseal["Трехкостный канал<br/>Анатомический костный блок для подъема крыла"]
    end
Трехкостный канал и анатомический блок
Для сохранения устойчивости центр тяжести смещен вниз:
- Большая грудная мышца: Занимает до 25% массы тела и мощно тянет плечо вниз;
- Подключичная мышца: Расположена под грудной мышцей, но поднимает крыло. Ее сухожилие проходит через трехкостный канал (образованный вороньей костью, лопаткой и ключицей), огибает его как шкив и крепится к верхней части плечевой кости, преобразуя нижнюю мышечную тягу в подъем крыла вверх.
6. Воздушные мешки и дыхание: Кислородный двигатель на высоте 9000 метров
Полет — самый энергозатратный локомоторный процесс. Человек теряет сознание от гипоксии на высоте 8 000 м, а горные гуси преодолевают Гималаи на высоте около 9 000 м в активном машущем полете. Это возможно благодаря двухцикловой дыхательной системе с воздушными мешками и непрерывным однонаправленным током воздуха.
  flowchart TD
    subgraph AvianRespiration ["Двухтактный непрерывный дыхательный цикл"]
        Inhale1["1-й вдох: Свежий воздух направляется непосредственно в задние воздушные мешки"]
        Exhale1["1-й выдох: Задние мешки прокачивают кислород через парабронхи легких"]
        Inhale2["2-й вдох: Обедненный воздух из легких засасывается в передние воздушные мешки"]
        Exhale2["2-й выдох: Передние мешки выталкивают воздух с углекислым газом наружу через трахею"]
        Inhale1 --> Exhale1 --> Inhale2 --> Exhale2
    end
Перекрестный газообмен (Cross-current System)
Легкие птиц имеют фиксированный объем (Парабронхи), а мешки служат мехами:
- Однонаправленный поток: И при вдохе, и при выдохе богатый кислородом воздух непрерывно движется через легкие в одном направлении;
- Перекрестный ток крови: Капилляры пересекают воздушные капилляры под прямым углом, благодаря чему парциальное давление кислорода в артериальной крови превышает его давление в выдыхаемом газе, в разы превосходя альвеолы млекопитающих.
7. Эволюция: От тероподных динозавров к современным птицам
Современная палеонтология доказала: птицы являются выжившими оперившимися динозаврами-тероподами.
  flowchart LR
    subgraph DinosaurToBird ["Эволюционные этапы зарождения птичьего полета"]
        Theropoda["Хищные тероподы<br/>(Полые кости, вилочка, двуногость)"] --> Pennaceous["Археоптерикс и анхиорнис<br/>(Асимметричные перья, длинный костный хвост)"]
        Pennaceous --> Enantiornithes["Энанциорнисы мела<br/>(Появление крылышка alula и трехкостного канала, зубы)"]
        Enantiornithes --> Neornithes["Веерохвостые птицы<br/>(Пигостиль, беззубый роговой клюв, мощный киль)"]
    end
Гипотеза WAIR (Wing-Assisted Incline Running)
В споре между древесной («сверху вниз») и беговой («снизу вверх») теориями профессор Кеннет Дайл предложил гипотезу бега по наклонным плоскостям с помощью крыльев (WAIR): нелетающие птенцы взмахами крыльев прижимают тело к крутым склонам и стволам деревьев, увеличивая сцепление лап при бегстве от хищников. Это давало адаптивное преимущество оперяющимся предкам задолго до развития настоящего полета.
8. Биомиметика в авиации: Уроки птиц для техники будущего
Миллионы лет естественного отбора направляют современную аэрокосмическую мысль:
- Морфинг-крылья (Morphing Wings): Замена жестких механических закрылков гибкими материалами с памятью формы;
- Законцовки крыльев (Винглены): Прямая копия расщепленных маховых перьев орлов, экономящая миллионы тонн топлива ежегодно;
- Машущие микро-БПЛА (Flapping MAVs): Воспроизведение вихрей передней кромки для создания сверхманевренных разведывательных дронов.
Полет птиц остается ярчайшим свидетельством силы эволюции и неисчерпаемым источником открытий для авиационной науки.