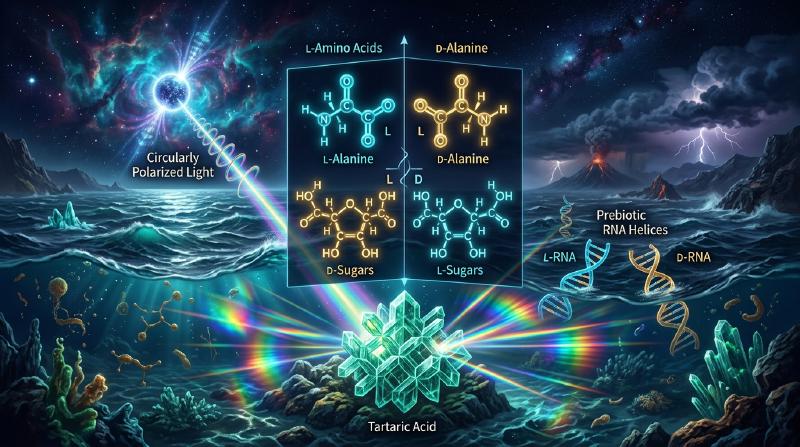
Olhe para as suas mãos. A sua mão esquerda e a sua mão direita têm rigorosamente os mesmos elementos: cinco dedos, as mesmas articulações, a mesma geometria geral. Contudo, por mais que tente rodá-las no espaço tridimensional, jamais conseguirá sobrepô-las de forma perfeita com as palmas voltadas para a mesma direção. Elas são imagens especulares mútuas que não se sobrepõem. Na química e na física, esta propriedade geométrica chama-se quiralidade, termo com raiz no grego cheir (mão).
Quando um químico sintetiza compostos quirais no laboratório a partir de reagentes aquirais, as leis da termodinâmica produzem invariavelmente uma proporção idêntica de 50 % de moléculas esquerdas e 50 % de moléculas direitas. Esta mistura equimolar designa-se racemato e não manifesta rotação da luz polarizada.
No entanto, a vida na Terra quebrou radicalmente esta simetria há pelo menos 3,8 mil milhões de anos:
- Proteínas: Todos os enzimas e estruturas celulares são construídos exclusivamente com L-aminoácidos (levógiros).
- Ácidos nucleicos: O esqueleto informacional do DNA e do RNA é formado unicamente por D-açúcares (D-ribose e D-desoxirribose, dextrógiros).
Este fenómeno biológico universal denomina-se homoquiralidade biológica. Por que razão a sopa orgânica primitiva adotou L-aminoácidos e D-açúcares e não o universo especular oposto?
  flowchart TD
    subgraph CHIRALITY_PT ["Princípios da Quiralidade e Quebra de Simetria"]
        direction TB
        MOL["Molécula Quiral (Carbono Estereogénico)"] --> MIRROR["Reflexo Especular"]
        MIRROR --> ENANT["Par de Enantiómeros (Imagens Não Sobreponíveis)"]

        ENANT --> PROP1["Propriedades Físicas Aquirais Iguais (Pontos de Fusão, Densidade)"]
        ENANT --> PROP2["Atividade Óptica: Desvio do plano da luz polarizada (+ / -)"]
        ENANT --> PROP3["Reconhecimento Quiral: Efeitos farmacológicos e odores divergentes"]

        ENANT --> HOMO["Biosfera Terrestre: Homoquiralidade 100% (L-aminoácidos & D-açúcares)"]
    end
1. O nascimento da estereoquímica: Louis Pasteur e o ácido tartárico
A descoberta da assimetria molecular remonta a 1848 e ao jovem cientista francês Louis Pasteur. Os produtores vinícolas observavam nas paredes dos tonéis a acumulação de sais de ácido tartárico, cujas soluções aquosas desviavam a luz polarizada para a direita (dextrógiro, $(+)$). Em contraste, o ácido racémico obtido sinteticamente possuía exatamente a mesma composição química, mas era opticamente inativo.
Pasteur cristalizou o sal de tartarato duplo de sódio e amónio a temperaturas inferiores a 28 °C. Ao examinar os cristais microscópicos, percebeu que as pequenas faces hemiédricas não eram idênticas: apresentavam duas formas dissimétricas, uma correspondendo à imagem refletida da outra no espelho.
Munido de pinças finas, separou os cristais em duas frações:
- A fração com cristais “à direita” desviava a luz polarizada para o sentido horário ($+$).
- A fração com cristais “à esquerda” provocava um desvio exatamente igual no sentido anti-horário ($-$).
- Ao juntar as duas soluções em partes iguais, a rotação anulava-se, reconstituindo o racemato inativo.
Pasteur concluiu brilhantemente que a forma externa assimétrica dos cristais decorria de uma assimetria espacial invisível no seio das próprias moléculas. Foi nessa fase que cunhou a sua célebre intuição: «A assimetria é a linha divisória essencial da vida».
| |
2. O modelo de três pontos e a tragédia da talidomida
Por que razão o organismo vivo reage de forma tão diferente perante moléculas que partilham rigorosamente a mesma massa molecular e os mesmos pontos de ebulição? Porque os recetores e enzimas celulares são eles próprios compostos por L-aminoácidos, gerando cavidades tridimensionais assimétricas.
O modelo de três pontos de Easson e Stedman (1933) sintetiza a interação: para desencadear uma resposta fisiológica correta, três sítios específicos do ligante devem emparelhar simultaneamente com três sítios complementares da bolsa recetora. O enantiómero especular apenas consegue fazer coincidir dois sítios, deixando o terceiro em conflito estérico ou desencontrado.
  flowchart LR
    subgraph THREE_POINT_PT ["Modelo de Três Pontos de Easson-Stedman"]
        direction TB
        REC["Bolsa Recetora Quiral (Sítios A, B, C)"]
        ENANT_R["Enantiómero Eutómero (R): Ligação tridimensional perfeita"] -->|Afinidade Elevada / Sinal Biológico| REC
        ENANT_S["Enantiómero Distómero (S): Desajuste espacial no terceiro sítio"] -->|Inativo ou Toxicidade Severa| REC
    end
Odores enantioméricos
- A (R)-(-)-carvona liga-se a recetores olfativos gerando o odor fresco a hortelã-verde.
- A (S)-(+)-carvona desencadeia a perceção aromática quente de cominho e alcaravia.
- Da mesma forma, o (R)-(+)-limoneno tem odor cítrico a laranja, enquanto o (S)-(-)-limoneno exala notas a resina e pinho.
O drama da talidomida e a proteína cereblon
O caso mais emblemático dos riscos da quiralidade na farmacologia foi a tragédia da talidomida no final dos anos 1950. Vendida sob a forma de mistura racémica para aliviar os enjoos matinais em grávidas, provocou deformações fetais gravíssimas (focomelia) em mais de dez mil recém-nascidos.
A elucidação molecular revelou que:
- O enantiómero (R) assegura a ação sedativa e calmante pretendida sem perigo teratogénico direto.
- O enantiómero (S) liga-se com afinidade elevada à proteína Cereblon (CRBN), um módulo da enzima E3 ubiquitina ligase. Esta ligação induz a destruição proteassomal do fator de transcrição SALL4, indispensável à génese dos membros no feto.
Mesmo que a indústria tivesse isolado o enantiómero (R) puro, o desfecho teria sido idêntico: no plasma sanguíneo humano, a pH neutro ($7{,}4$), o hidrogénio no centro quiral sofre interconversão tautomérica rápida, provocando racemização completa in vivo em apenas 4 a 5 horas.
3. Por que razão a vida exige homoquiralidade? A restrição biofísica
Poderia a biologia funcionar com polímeros formados por uma mistura aleatória de L- e D-aminoácidos? A biofísica estrutural fornece uma resposta categórica: não.
  flowchart TD
    subgraph RAMA_PT ["Homoquiralidade e Conformação Proteica"]
        direction TB
        HOMO_PROT["Polipéptido 100% L-Homoquiral"] --> HELIX["Hélice alfa dextrógira regular (3,6 resíduos/volta)"]
        HOMO_PROT --> SHEET["Folha beta pregueada com pontes de H alinhadas"]
        HELIX --> ACTIVE["Enzima funcional com centro catalítico rígido"]

        HETERO_PROT["Polipéptido Heteroquiral (Mistura aleatória L/D)"] --> CLASH["Conflitos estéricos no diagrama de Ramachandran"]
        HETERO_PROT --> RANDOM["Enovelamento caótico (Random Coil)"]
        RANDOM --> DEAD["Incapacidade total de catálise biológica"]
    end
O diagrama de Ramachandran e a estabilidade da hélice alfa
A geometria de uma cadeia polipeptídica assenta nos ângulos diedros $\phi$ e $\psi$. No diagrama de Ramachandran, os resíduos de L-aminoácidos ocupam quadrantes de baixa energia que viabilizam a rotação contínua da hélice $\alpha$ dextrógira, ligada por pontes de hidrogénio entre o carbonilo da posição $i$ e o grupo amino da posição $i+4$.
A introdução de um único D-aminoácido numa cadeia de L-resíduos projeta a sua cadeia lateral de modo desfavorável, desmantelando a estabilidade da hélice. Sem estabilidade conformacional, o centro ativo das enzimas perde a precisão atómica necessária para acelerar reações bioquímicas.
A inibição cruzada quiral no RNA
Nos ensaios clássicos liderados por Leslie Orgel para estudar a origem do RNA, constatou-se que monómeros de ribonucleótidos L incorporam-se nas extremidades de moldes homoquírais de D-RNA. Porém, por apresentarem a geometria invertida, bloqueiam a adição dos nucleótidos seguintes. Esta inibição cruzada quiral (Chiral Cross-Inhibition) paralisa a replicação não enzimática, demonstrando que a pureza enantiomérica tinha de preceder a emergência do código genético.
4. Como surgiu a quebra original de simetria?
Para explicar o surgimento do desequilíbrio enantiomérico primordial, a ciência desenvolveu duas grandes vertentes:
  flowchart TD
    subgraph HYPOTHESES_PT ["Hipóteses para a Quebra Primordial de Simetria"]
        direction TB
        ASTRO["Astrofísica: Luz Polarizada Circular (CPL) em berçários estelares"] --> METEORITOS["Fotólise assimétrica no espaço -> Excesso L de 2-18% no meteorito Murchison"]

        WEAK["Física Fundamental: Violação de Paridade na Força Fraca (Bosões Z0)"] --> PVED["Diferença energética diferencial (PVED ~ 10^-14 J/mol) favorável a L"]

        SURF["Geologia: Adsorção seletiva em cristais minerais quirais (quartzo, calcite)"] --> GEO_SURF["Segregação espacial sobre minerais prebióticos"]

        METEORITOS --> AUTO["Amplificação Autocatalítica (Modelo de Frank e Reação de Soai)"]
        PVED --> AUTO
        GEO_SURF --> AUTO
        AUTO --> HOMO_FINAL["Consolidação da Homoquiralidade a 100%"]
    end
Hipótese cósmica: Fotólise por radiação polarizada circularmente
A queda do meteorito carbonáceo de Murchison na Austrália em 1969 trouxe amostras intocadas de matéria extraterrestre. Entre dezenas de aminoácidos identificados, vários compostos não biológicos (como a isovalina) acusaram um excesso enantiomérico L constante entre 2 % e 18 %.
Em regiões de nascimento de estrelas massivas, a radiação ultravioleta é dispersa por partículas de poeira orientadas por campos magnéticos galácticos, gerando feixes intensos de luz polarizada circularmente (CPL). Este tipo de radiação destrói preferencialmente um dos enantiómeros através de fotólise seletiva, originando um superavit do outro isómero que foi posteriormente transportado para a Terra jovem por cometas e asteroides.
Hipótese física: Violação de paridade na força nuclear fraca
$$\Delta E_{\text{PVED}} \approx 10^{-14} \text{ a } 10^{-16} \, \text{J/mol}$$Mesmo tratando-se de uma diferença ínfima, em cenários longe do equilíbrio termodinâmico, esta inclinação persistente pôde desencadear uma transição de fase macroscópica em favor da configuração que hoje domina a biosfera.
5. Amplificação autocatalítica: O modelo de Frank e a reação de Soai
Um excedente inicial de alguns pontos percentuais é manifestamente insuficiente para sustentar a maquinaria molecular da vida. Tornava-se imperativo encontrar um mecanismo de amplificação não linear.
O modelo de Frank (1953)
O físico britânico Frederick Charles Frank formulou um modelo matemático inovador assente em dois princípios fundamentais:
- Autocatálise assimétrica: Cada enantiómero atua como catalisador da sua própria criação ($A + L \rightarrow 2L$).
- Inibição mútua recíproca: Quando uma molécula L colide com uma D, forma-se irreversivelmente um dímero inativo ($L + D \rightarrow LD$).
O estado racémico ($\Delta = 0$) é um equilíbrio instável. Qualquer flutuação pontual induz o crescimento exponencial da espécie em ligeira vantagem, que aniquila o competidor até à extinção da forma minoritária.
  flowchart LR
    subgraph DYNAMICS_PT ["Mecanismo Cinético de Frank"]
        direction TB
        A["Reagente Aquiral A"] -->|Autocatálise L| 2L["2 Moléculas L"]
        A -->|Autocatálise D| 2D["2 Moléculas D"]
        2L -.->|Inibição Mútua| INERT["Dímero Inerte Heteroquiral (L-D)"]
        2D -.->|Inhibição Mútua| INERT
    end
A reação de Soai: Demonstração prática
Em 1995, o químico japonês Kenso Soai comprovou experimentalmente a exequibilidade do modelo de Frank. Na adição de di-isopropilzinco a pirimidina-5-carbaldeídos, o alcóxido formado comporta-se como autocatalisador da sua própria formação. Partindo de um excesso inicial microscópico de apenas $0{,}00005\%$ ee (50 ppb), a reação amplifica o produto até alcançar uma pureza óptica superior a $99{,}5\%$ ee em ciclos consecutivos.
6. Biologia sintética: O limiar da ‘Vida Espelho’ (Mirror Life)
Que sucederia se os cientistas concebessem em laboratório um organismo vivo funcional baseado exclusivamente em D-aminoácidos e L-açúcares?
O estado atual das pesquisas
Equipas na Universidade de Tsinghua (lideradas por Ting Zhu) já sintetizaram polimerases artificiais feitas de D-aminoácidos, capazes de transcrever L-RNA e replicar L-DNA in vitro.
Potencial clínico e preocupações de biossegurança
- Vantagens terapêuticas: Moléculas espelho como os Spiegelmers (aptâmeros de L-RNA) e péptidos D não são degradados pelas enzimas proteolíticas do organismo humano, conferindo uma durabilidade ímpar no tratamento de doenças oncológicas e inflamatórias.
- Riscos ecológicos catastróficos: Uma bactéria espelho autónoma escapada para a natureza seria invisível para o sistema imunitário dos mamíferos (incapaz de processar antigénios invertidos) e imune à lise por vírus bacteriófagos. Sem predadores biológicos naturais, poderia drenar recursos inorgânicos essenciais com consequências irreversíveis para os ecossistemas globais.
Conclusão: A geometria profunda da vida
A homoquiralidade da matéria viva não é um mero capricho estético, mas a base estrutural insubstituível que torna possível o dobramento de enzimas e a fidelidade da herança biológica. O seu esclarecimento integra a astrofísica, a física quântica e a bioquímica na busca pelas origens da ordem no cosmos.