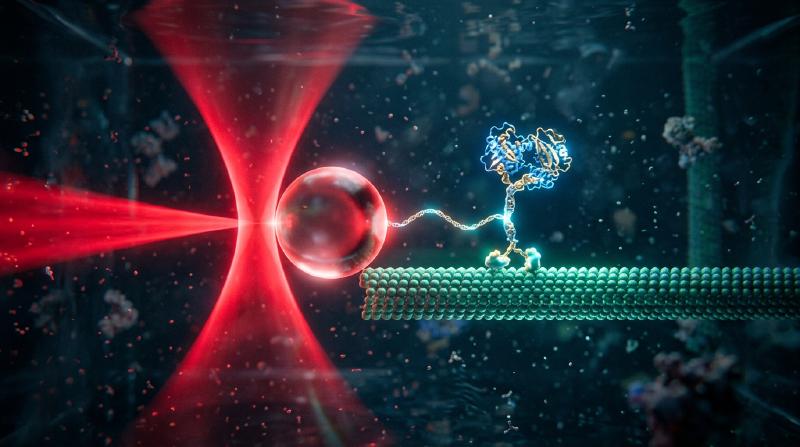
1. 서론: 질량이 없는 빛이 어떻게 물질을 밀고 당길 수 있는가?
일상적인 거시 세계에서 빛은 질량도 무게도 없는 것처럼 느껴진다. 그러나 기초 물리학의 관점에서 전자기파는 에너지와 함께 선운동량(Linear Momentum)을 운반한다. 1619년 요하네스 케플러(Johannes Kepler)는 혜성의 먼지 꼬리가 항상 태양 반대쪽을 향하는 것을 보고 태양빛이 물질을 밀어내는 복사압(Radiation Pressure)을 가설로 제시했다. 1873년 맥스웰(James Clerk Maxwell)은 포인팅 벡터 $\mathbf{S} = \frac{1}{\mu_0}(\mathbf{E} \times \mathbf{B})$를 통해 전자기파의 운동량 전달을 증명했고, 1905년 아인슈타인의 특수상대성이론 에너지-운동량 관계식 $E^2 = (pc)^2 + (mc^2)^2$에서 정지 질량 $m = 0$인 광자(Photon)의 운동량은 다음과 같이 주어진다:
$$ p = \frac{E}{c} = \frac{h\nu}{c} = \frac{h}{\lambda} $$출력 $P$인 레이저 빔이 완전 흡수체나 완전 반사 거울에 수직 입사할 때 가해지는 복사압 힘은 각각 다음과 같다:
$$ F_{\text{abs}} = \frac{P}{c}, \qquad F_{\text{ref}} = \frac{2P}{c} $$광속 $c \approx 3.0 \times 10^8\,\text{m/s}$가 매우 크므로 $1\,\text{W}$ 레이저의 힘은 $3.3\,\text{nN}$에 불과하다. 하지만 마이크로미터($10^{-6}\,\text{m}$) 크기의 세포·미세구슬이나 나노미터($10^{-9}\,\text{m}$) 크기의 생체 고분자 영역으로 내려가면 상황은 완전히 역전된다. 반지름 $a = 1\,\mu\text{m}$인 폴리스티렌 구슬의 질량은 $m \approx 4.4 \times 10^{-15}\,\text{kg}$이며 중력은 $mg \approx 0.043\,\text{pN}$($1\,\text{pN} = 10^{-12}\,\text{N}$)에 불과하다. 수십 밀리와트의 집속 레이저가 만드는 수 피코뉴턴($\text{pN}$)의 힘은 중력보다 수만 배 크며, 특히 빛의 세기가 가장 강한 초점 중심으로 투명 입자를 끌어당기는 광학 기울기력(Optical Gradient Force)을 이용해 단일 레이저 빔으로 미시 물질을 3차원으로 포획·조작하는 기술이 바로 2018년 노벨 물리학상 수상 업적인 광학 집게(Optical Tweezers)이다.
2. 아서 애슈킨(Arthur Ashkin)의 돌파구와 광학 집게의 탄생
1970년 벨 연구소의 아서 애슈킨(Arthur Ashkin, 1922–2020)은 물속의 투명 라텍스 미세구슬에 아르곤 이온 레이저($\lambda = 514.5\,\text{nm}$)를 조사했다. 그는 입자들이 단순히 앞으로 밀려날 것이라 예상했으나, 놀랍게도 빔 가장자리의 구슬들이 가우시안 빔의 가장 밝은 중심축으로 강하게 끌려 들어오는 현상을 발견했다! 같은 해 그는 마주 보는 두 레이저 빔으로 최초의 3차원 광학 포획을 구현했다.
1986년 애슈킨은 동료 J. M. Dziedzic, J. E. Bjorkholm 및 스티븐 추(Steven Chu)와 함께 높은 개구수($\text{NA} = 1.25$)의 대물렌즈로 강하게 집속된 단일 레이저 빔만으로 축방향 기울기력이 전방 산란력을 이겨내고 $10\,\mu\text{m}$에서 $25\,\text{nm}$에 이르는 유전체 입자를 3차원으로 포획함을 증명했다(Optics Letters, 11, 288, 1986). 이듬해인 1987년, 애슈킨은 물과 생체 시료의 광손상을 최소화하는 근적외선 Nd:YAG 레이저($\lambda = 1064\,\text{nm}$)를 도입하여 살아있는 대장균(E. coli)과 효모 세포를 손상 없이 포획하고 세포 분열까지 관찰하는 데 성공했다.
3. 기하광학 영역(미 산란, $a \gg \lambda$)에서의 포획 메커니즘
입자 반지름이 파장보다 훨씬 클 때($a \gg \lambda$), 굴절률 $n_p > n_m$($m = n_p/n_m > 1$)인 투명 구슬을 통과하며 굴절되는 출력 $P_{\text{ray}}$인 광선은 운동량 보존 법칙에 의해 구슬에 반작용 힘 $\mathbf{F}_{\text{ray}}$를 가한다:
$$ \mathbf{F}_{\text{ray}} = -\frac{d\mathbf{p}_{\text{light}}}{dt} = -\frac{n_m P_{\text{ray}}}{c} \left( \hat{\mathbf{u}}_{\text{out}} - \hat{\mathbf{u}}_{\text{in}} \right) $$
  flowchart TD
    subgraph Lateral["1. 가우시안 빔에서의 횡방향(측면) 복원력 메커니즘"]
        L1["구슬 중심이 광축에서 오른쪽(+x)으로 변위됨"] --> L2["왼쪽을 통과하는 광선 A는 밝은 빔 중심부(고출력 P_A)에서 입사하여 오른쪽으로 굴절"]
        L1 --> L3["오른쪽을 통과하는 광선 B는 어두운 빔 가장자리(저출력 P_B)에서 입사하여 왼쪽으로 굴절"]
        L2 --> L4["광선 A에 의한 왼쪽 반작용 힘 F_A가 광선 B의 오른쪽 힘 F_B보다 훨씬 큼"]
        L3 --> L4
        L4 --> L5["알짜 횡방향 기울기력 F_x가 구슬을 광축 중심(x = 0)으로 복원"]
    end

    subgraph Axial["2. 고개구수(High-NA) 집속 하에서의 축방향(종방향) 복원력 메커니즘"]
        A1["구슬이 초점 O를 지나 하류(+z)로 변위됨"] --> A2["큰 각도로 발산하던 외곽 광선들이 볼록렌즈 역할의 구슬에 의해 광축 쪽으로 굴절"]
        A2 --> A3["출사 광선의 전방 z방향 운동량 p_z가 증가함 (Δp_z > 0)"]
        A3 --> A4["운동량 보존에 의해 구슬은 초점 O를 향하는 후방 반작용 힘(-z)을 받음"]
        A4 --> A5["후방 기울기력이 표면 반사에 의한 전방 산란력을 극복하여 3차원 안정 포획 완성"]
    end
- 횡방향 포획: 구슬이 중심축에서 벗어나면 빔 중심 쪽을 지나는 강한 광선의 굴절 반작용이 가장자리 약한 광선의 반작용을 압도하여 구슬을 항상 최대 세기 중심($x=y=0$)으로 끌어당긴다.
- 축방향 포획과 고개구수(High-NA) 대물렌즈의 필수성: 구슬이 초점 하류($+z$)로 밀려나면, 크게 발산하던 외곽 광선들이 구슬을 통과하며 평행하게 모아져 빛의 전방 운동량 $p_z$가 증가($\Delta p_z > 0$)한다. 그 반작용으로 구슬은 초점 쪽($-z$)으로 당겨진다. 전방 표면 반사(산란력)를 이기기 위해서는 큰 입사각의 외곽 광선이 필수적이므로 고개구수 대물렌즈($\text{NA} = n_m \sin\theta_{\max} \ge 1.2$)의 후방 조리개를 가득 채워야 한다.
4. 전자기 쌍극자 영역(레일리 산란, $a \ll \lambda$): 기울기력과 산란력
입자 반지름이 파장보다 훨씬 작을 때($a \ll \lambda$), 나노입자는 유도 전기 쌍극자 $\mathbf{p} = \alpha \mathbf{E}$로 작용하며, 준정적 클라우지우스-모소티(Clausius-Mossotti) 편극률 $\alpha$는 부피($\propto a^3$)에 비례한다:
$$ \alpha = 4\pi n_m^2 \varepsilon_0 a^3 \left( \frac{m^2 - 1}{m^2 + 2} \right) \qquad \left(m \equiv \frac{n_p}{n_m}\right) $$불균일 전자기장 내 로렌츠 힘의 시간 평균과 레일리 산란 단면적($\sigma_{\text{scat}} \propto k^4 a^6$)으로부터 보존력인 기울기력 $\mathbf{F}_{\text{grad}}$와 비보존력인 산란력 $\mathbf{F}_{\text{scat}}$를 얻는다:
$$ \mathbf{F}_{\text{grad}}(\mathbf{r}) = \frac{2\pi n_m a^3}{c} \left( \frac{m^2 - 1}{m^2 + 2} \right) \nabla I(\mathbf{r}) = -\nabla U(\mathbf{r}) $$$$ \mathbf{F}_{\text{scat}}(\mathbf{r}) = \frac{n_m \sigma_{\text{scat}}}{c} I(\mathbf{r})\hat{\mathbf{z}} = \frac{128 \pi^5 n_m^5 a^6}{3 c \lambda_0^4} \left( \frac{m^2 - 1}{m^2 + 2} \right)^2 I(\mathbf{r}) \hat{\mathbf{z}} $$| 물리적 특성 | 광학 기울기력 ($\mathbf{F}_{\text{grad}}$) | 광학 산란력 ($\mathbf{F}_{\text{scat}}$) |
|---|---|---|
| 물리적 기원 | 불균일 전기장 내 유도 쌍극자의 퍼텐셜 에너지 최소화 (굴절 반작용) | 광자 흡수 및 등방성 레일리 재복사(또는 프레넬 반사)에 의한 운동량 전달 |
| 작용 방향 | 빛의 세기 기울기 $\nabla I(\mathbf{r})$ 방향 ($n_p > n_m$일 때 3차원 초점 중심) | 빔 진행 방향 $\hat{\mathbf{z}}$ (입자를 하류로 밀어냄) |
| 입자 반지름 $a$ 스케일링 ($a \ll \lambda$) | 입자 부피에 비례 ($\propto a^3$) | 입자 부피의 제곱에 비례 ($\propto a^6$) |
| 파장 $\lambda_0$ 스케일링 | 초점 기하학에 의존 | 파장의 4제곱에 반비례 ($\propto \lambda_0^{-4}$) |
| 상대 굴절률 $m = n_p/n_m$ 의존성 | $\left(\frac{m^2-1}{m^2+2}\right)$에 비례 ($m<1$이면 척력) | $\left(\frac{m^2-1}{m^2+2}\right)^2$에 비례 (항상 양의 전방 추력) |
실온($T = 300\,\text{K}$)에서 브라운 열운동 에너지 $k_B T \approx 4.14\,\text{pN}\cdot\text{nm}$에 의한 탈출을 막으려면 퍼텐셜 우물 깊이가 $|U_{\min}| \propto a^3 I_{\max} \gtrsim 10\,k_B T$여야 한다. $|U_{\min}| \propto a^3$이므로 $5\,\text{nm}$ 단백질을 직접 포획하는 대신 마이크로미터 크기의 유전체 구슬($2a \sim 0.5\text{–}2\,\mu\text{m}$)을 ‘손잡이(Handle)‘로 결합하여 조작한다.
5. 브라운 운동 제어: 과감쇠 랑주뱅 방정식과 피코뉴턴 강성 보정
평형점 근처($|\Delta x| \lesssim 150\,\text{nm}$)에서 광학 퍼텐셜은 조화 퍼텐셜 $U(x) \approx \frac{1}{2}\kappa_x x^2$를 형성하여 후크의 법칙(Hooke’s Law)을 따르는 선형 용수철로 작동한다:
$$ F_{\text{trap}}(x) = -\kappa_x \Delta x $$여기서 $\kappa_x$($0.005\text{–}1.0\,\text{pN/nm}$)는 트랩 강성(Trap Stiffness)이다. 낮은 레이놀즈 수($\text{Re} \sim 10^{-5} \ll 1$) 유체에서 관성 항 $m\ddot{x}$는 수십 나노초 내에 소멸하며, 구슬의 궤적 $x(t)$는 스토크스 점성 저항 $\gamma = 6\pi\eta_{\text{vis}}a$와 열적 백색 잡음에 지배되는 과감쇠 랑주뱅 방정식(Overdamped Langevin Equation)을 따른다:
$$ \gamma \frac{dx(t)}{dt} + \kappa x(t) = \sqrt{2\gamma k_B T}\,\eta(t) $$
  flowchart TD
    subgraph Detection["후방 초점면(BFP) 간섭계를 이용한 서브나노미터 위치 검출"]
        I1["근적외선 레이저(λ = 1064 nm)를 고개구수 대물렌즈로 집속"] --> I2["수용액 내 유전체 미세구슬(2a = 0.5–2 μm) 3차원 포획"]
        I2 --> I3["구슬의 전방 산란파와 비산란 투과파 간의 구이(Gouy) 위상 간섭"]
        I3 --> I4["집광렌즈 후방 초점면의 4분할 포토다이오드(QPD)로 간섭 무늬 검출"]
        I4 --> I5["100 kHz 대역폭으로 옹스트롬(Å) 해상도 변위 신호 x(t) 획득"]
    end

    subgraph Calibration["트랩 강성(κ) 정밀 보정의 3대 기법"]
        I5 --> M1["1. 에너지 등분배 법칙: 위치 분산 ⟨x²⟩ 측정 후 κ = k_B T / ⟨x²⟩ 계산"]
        I5 --> M2["2. 파워 스펙트럼 밀도(PSD): 로렌츠 스펙트럼 S_xx(f) 피팅으로 코너 주파수 f_c = κ / (2πγ) 도출"]
        I5 --> M3["3. 스토크스 유체 항력법: 피에조 스테이지를 속도 v로 이동시켜 변위 Δx = γ(h)v / κ 측정"]
    end
- 에너지 등분배 법칙(Equipartition Method): $\frac{1}{2}\kappa \langle x^2 \rangle = \frac{1}{2}k_B T \implies \kappa = k_B T / \langle x^2 \rangle$ (점성 계수 $\eta_{\text{vis}}$나 입자 반지름 $a$ 정보 불필요).
- 파워 스펙트럼 밀도(PSD) 로렌츠 분석: 푸리에 변환을 통해 유도되는 단측 파워 스펙트럼은 코너 주파수 $f_c$를 갖는 로렌츠 함수이다: $$ S_{xx}(f) = \frac{k_B T}{\pi^2 \gamma \left( f_c^2 + f^2 \right)}, \qquad f_c = \frac{\kappa}{2\pi \gamma} $$ $f \ll f_c$에서는 트랩 구속에 의한 평탄 영역을, $f \gg f_c$에서는 자유 브라운 확산($\propto f^{-2}$)을 보이며, 저주파 드리프트 잡음을 배제하고 $\kappa$와 검출기 감도 $\beta$를 동시에 보정한다.
- 스토크스 유체 항력법(팩센 벽면 보정 포함): 유속 $v$에 의한 항력 $F = \gamma_\parallel(h)v = \kappa \Delta x$를 측정한다.
6. 단일 분자 생물물리학 혁명: DNA 탄성과 분자 모터의 스텝 측정
생체 시료의 광손상을 막기 위해 근적외선 생물학적 창($\lambda = 1064\,\text{nm}$)과 산소 제거 효소 시스템(Oxygen Scavenging System)을 사용한다.
카를로스 부스타만테(Carlos Bustamante)와 단일 DNA 분자의 엔트로피 탄성
1992–1996년 부스타만테 연구진은 바이오틴-스트렙타비딘 결합으로 단일 $\lambda$-파지 이중가닥 DNA($L_0 \approx 16.5\,\mu\text{m}$)를 당기며 힘-신장 곡선 $F(z)$를 측정했고, 이것이 기생충 사슬(Worm-Like Chain, WLC) 모델(Marko & Siggia, 1995)을 정확히 따름을 입증했다:
$$ F(z) = \frac{k_B T}{L_p} \left[ \frac{1}{4\left(1 - z/L_0\right)^2} - \frac{1}{4} + \frac{z}{L_0} \right] $$여기서 지속 길이 $L_p \approx 50\,\text{nm}$이며, $F \approx 65\,\text{pN}$에서는 DNA 길이가 $1.7$배로 급증하는 과신장 상전이(Overstretching Transition)가 일어난다.
스티븐 블록(Steven Block): 키네신의 8 nm 스텝과 RNA 중합효소의 단일 염기쌍 해상도
- 키네신(Kinesin-1) 분자 모터: 1993년 스티븐 블록 연구진(Nature, 365, 721)은 미세소관 위를 걷는 단일 키네신이 연속 이동이 아니라 $\Delta d = 8.2\,\text{nm}$의 불연속 스텝으로 이동함을 최초로 관측했다. 한 걸음당 정확히 ATP 1분자를 가수분해하며, 정지 힘(Stall Force) $F_{\text{stall}} \approx 6\text{–}7\,\text{pN}$에서 멈추고 약 $50\text{–}60\%$의 높은 열역학적 효율로 작동한다.
- 이중 트랩 아령형(Dumbbell) 광학 집게와 RNA 중합효소(RNAP): 2005년 블록 연구진은 헬륨 가스 챔버 내 이중 광학 트랩으로 기판 드리프트를 제거하여, 대장균 RNA 중합효소가 DNA를 따라 염기쌍 하나씩 전사할 때 이동하는 $3.4\,\text{\AA}$($0.34\,\text{nm}$) 단일 염기쌍 스텝을 직접 분해하는 쾌거를 이루었다.
7. 최첨단 진화: 홀로그래픽 광학 집게, 플라즈모닉 나노집게, 진공 양자 광역학
- 홀로그래픽 광학 집게(HOT) 및 광학 스패너(Optical Spanner): 공간 광변조기(SLM)로 수백 개의 트랩을 동시에 제어하며, 원편광 스핀 각운동량($\pm\hbar$)이나 라게르-가우스 소용돌이 빔($e^{i\ell\phi}$)의 궤도 각운동량($\ell\hbar$)을 전달해 미시 입자를 회전시킨다.
- 플라즈모닉 나노집게(Plasmonic Nanotweezers): 금속 나노 안테나의 국소 표면 플라즈몬 공명(LSPR)으로 회절 한계 이하의 극단적 전기장 기울기를 생성하여 $10\,\text{nm}$ 이하의 단일 단백질을 구슬 없이 직접 포획한다.
- 중성 원자 배열 양자 시뮬레이터와 진공 부양 양자 광역학: 초고진공에서 레이저 냉각된 중성 원자들을 광학 집게 배열에 가두어 수백 큐비트 양자 컴퓨터를 구현하며, 부양된 실리카 나노구슬을 양자역학적 운동 바닥 상태($\bar{n} < 1$ 포논)로 냉각하여 거시적 양자 중첩과 중력·암흑물질 탐색의 새 지평을 열고 있다.