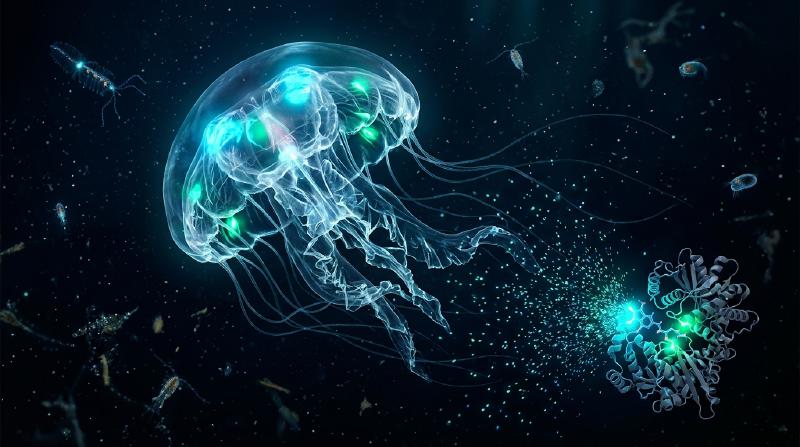
초여름 밤 개울가를 수놓는 반딧불이(Luciola cruciata, Photinus pyralis)의 연두색 불빛이나, 태양빛이 전혀 닿지 않는 수심 $1,000\,\text{m}$의 심해(중심해대 및 점심해대)에서 흡혈오징어(Vampyroteuthis infernalis), 샛비늘치(Myctophidae), 초롱아귀, 해파리(Aequorea victoria)가 뿜어내는 푸른 섬광은 자연계의 가장 경이로운 광학 현상이다.
인류가 사용해 온 고전적인 광원—촛불($\sim 1,700\,\text{K}$)이나 백열전구의 텅스텐 필라멘트($\sim 2,800\,\text{K}$)—은 물질을 수천 켈빈의 고온으로 가열해야만 가시광선을 방출할 수 있다. 켜진 백열전구를 맨손으로 만지면 투입 에너지의 $90\%$ 이상이 적외선 열로 방출되기 때문에 즉각 화상을 입는다. 그러나 빛나는 반딧불이를 손바닥 위에 올려놓아도 배 부분의 발광기(Photophore)는 주변 기온과 똑같은 실온($T \approx 295\text{–}300\,\text{K}$, 즉 $22\text{–}27\,^\circ\text{C}$)을 유지한다. 애초에 생명체의 단백질과 효소는 $315\text{–}323\,\text{K}$($42\text{–}50\,^\circ\text{C}$)만 넘어도 수소 결합과 소수성 코어가 파괴되는 비가역적 열변성(Thermal Denaturation)을 일으켜 사멸한다.
그렇다면 생명체는 어떻게 열복사의 법칙을 우회하여 실온에서 화학 결합 에너지를 단일 분자의 전자 들뜬 단일항 상태($S_1^*$)로 직접 주입하고, 최대 $41\%\text{–}88\%$에 달하는 경이로운 양자 수율로 ‘차가운 빛(Cold Light)’을 만들어내는 것일까?
제1장: 열복사(Incandescence)와 루미네선스(Luminescence)의 물리학
1.1 가시광선 광자 에너지와 실온 열에너지($k_B T$)의 압도적 격차
인간의 망막이 감지하는 가시광선 파장 영역은 $\lambda = 400\,\text{nm}$(보라색)에서 $700\,\text{nm}$(적색) 사이이다. 파장 $\lambda$인 광자 1개의 에너지 $E_{\text{photon}}$과 1몰당 광자 에너지 $E_{\text{mol}}$은 다음과 같다:
$$E_{\text{photon}} = h\nu = \frac{hc}{\lambda} \approx \frac{1239.8\,\text{eV}\cdot\text{nm}}{\lambda(\text{nm})}$$- 반딧불이의 황록색 빛($\lambda \approx 560\,\text{nm}$): $E_{\text{photon}} \approx 2.21\,\text{eV}$, $E_{\text{mol}} = N_A h\nu \approx 213.6\,\text{kJ/mol}$.
- 심해 생물의 청색 빛($\lambda \approx 470\,\text{nm}$): $E_{\text{photon}} \approx 2.64\,\text{eV}$, $E_{\text{mol}} \approx 254.5\,\text{kJ/mol}$.
반면, 실온 $T = 300\,\text{K}$에서 분자 열운동의 평균 에너지 $k_B T$는 다음과 같이 극히 작다:
$$k_B T \big|_{T=300\,\text{K}} \approx 0.02585\,\text{eV}, \qquad RT \big|_{T=300\,\text{K}} \approx 2.494\,\text{kJ/mol}$$즉, 가시광선 광자 1개를 생성하려면 실온 평균 열에너지($0.026\,\text{eV}$)의 약 100배에 달하는 $2.2\text{–}2.6\,\text{eV}$의 집중된 에너지가 필요하다! 열평형 상태에서 $300\,\text{K}$의 열요동만으로 $\Delta E = 2.21\,\text{eV}$의 전자 들뜬 상태가 점유될 볼츠만 확률 인자는 $\exp(-\Delta E / k_B T) = \exp(-85.5) \approx 7.4 \times 10^{-38}$로 사실상 0이다.
1.2 플랑크 흑체복사 법칙과 빈의 변위 법칙
물체를 가열하여 빛을 내는 열복사(Incandescence)는 플랑크 법칙(Planck’s Law)과 빈의 변위 법칙(Wien’s Displacement Law)을 따른다:
$$B_\lambda(\lambda, T) = \frac{2hc^2}{\lambda^5} \frac{1}{\exp\left(\dfrac{hc}{\lambda k_B T}\right) - 1}, \qquad \lambda_{\max} \cdot T = 2.8978 \times 10^{-3}\,\text{m}\cdot\text{K}, \qquad J = \sigma T^4$$- 실온의 생명체($T = 300\,\text{K}$): 복사 피크 파장은 $\lambda_{\max} \approx 9.66\,\mu\text{m}$(중적외선)에 위치하며 가시광선 방출은 전혀 없다.
- 백열전구 텅스텐 필라멘트($T \approx 2,800\,\text{K}$): 피크 파장이 $\lambda_{\max} \approx 1,035\,\text{nm}$(근적외선)에 머물러 투입 전력의 $90\%\text{–}95\%$가 보이지 않는 적외선 열로 낭비된다.
- 태양 표면($T \approx 5,778\,\text{K}$): 비로소 $\lambda_{\max} \approx 501\,\text{nm}$로 가시광선 한가운데에 도달한다.
1.3 루미네선스(냉광): 열평형을 우회하는 양자 선택적 여기
1888년 물리학자 Eilhardt Wiedemann이 정의한 루미네선스(Luminescence, 냉광)는 거시적 온도 $T$를 높이지 않고 특정 분자의 전자 궤도($\text{HOMO} \to \text{LUMO}$)에만 선택적으로 $2\text{–}3\,\text{eV}$의 에너지를 주입하여 들뜬 상태($S_1^*$)를 직접 생성하는 비열적 발광 현상이다.
| 발광 분류 | 영문 명칭 | 에너지원 (여기 메커니즘) | 대표적 사례 및 생물 시스템 | 작동 온도 |
|---|---|---|---|---|
| 열복사 (백열) | Incandescence | 물질 전체의 무작위 열운동 (줄열, 연소열) | 태양, 촛불, 백열전구 필라멘트 | $1,500\text{–}6,000\,\text{K}$ |
| 형광 (광루미네선스) | Fluorescence | 외부 단파장 광자($h\nu_{\text{ex}}$) 흡수 후 스핀 허용 전이($S_1 \to S_0$) | 해파리 녹색형광단백질(GFP), 산호, 형광펜 | 실온 ($\sim 300\,\text{K}$) |
| 인광 (광루미네선스) | Phosphorescence | 광흡수 후 계간교차(ISC)를 거친 스핀 금지 전이($T_1 \to S_0$) | 야광 도료($\text{SrAl}_2\text{O}_4:\text{Eu}^{2+}$), 야광 시계 | 실온 ($\sim 300\,\text{K}$) |
| 전계발광 | Electroluminescence | 전기장에 의한 전자와 정공의 재결합 | 질화갈륨($\text{GaN}$) 청색/백색 LED, OLED | 실온 |
| 화학발광 | Chemiluminescence | 발열 화학반응(과산화물 개열)에 의한 $S_1^*$ 화학적 여기 | 과학수사 루미놀(Luminol) 반응, 야광봉(사이알륨) | 실온 |
| 생물발광 | Bioluminescence | 효소(루시페레이스)가 촉매하는 생체 내 화학발광 | 반딧불이, 바다반딧불이, 야광충, 발광 박테리아, 발광 버섯 | 생체 온도 ($275\text{–}310\,\text{K}$) |
제2장: 생물발광 vs. 형광(GFP) vs. 인광, 그리고 BRET 에너지 전달
대중 매체에서 흔히 혼동하는 생물발광(Bioluminescence)과 생물형광(Biofluorescence, 예: GFP)은 광물리학적으로 완전히 다르다:
- 형광(Fluorescence, 예: GFP): 반드시 외부에서 여기광($h\nu_{\text{ex}}$, 자외선이나 청색광)을 비춰주어야만 빛을 내는 광물리 과정이다. 바닥상태 $S_0$에서 $S_1$으로 광자를 흡수($10^{-15}\,\text{s}$)한 뒤 피코초($10^{-12}\,\text{s}$) 동안 진동 이완으로 일부 열을 잃고, 나노초($\tau \approx 10^{-9}\,\text{s}$) 수명으로 더 긴 파장의 빛($\lambda_{\text{em}} > \lambda_{\text{ex}}$, 스토크스 이동 / Stokes Shift)을 방출한다. 외부 빛이 없는 암흑 속에서는 절대 스스로 빛나지 못한다.
- 인광(Phosphorescence): 단일항 들뜬 상태 $S_1$($\uparrow\downarrow, S=0$)에서 스핀-궤도 결합에 의한 계간교차(Intersystem Crossing, ISC)를 통해 삼중항 상태 $T_1$($\uparrow\uparrow, S=1$)으로 넘어간 뒤, 스핀 금지 전이($\Delta S = 1$)인 $T_1 \to S_0$를 통해 밀리초에서 수 시간 동안 잔광을 방출한다.
- 생물발광(Bioluminescence): 외부 여기광이 전혀 필요 없는 광화학 과정(화학적 여기 / Chemiexcitation)이다. 완전한 암흑 속에서도 기질인 루시페린(Luciferin)이 효소 루시페레이스(Luciferase)에 의해 산화되면서 퍼텐셜 에너지면 교차를 통해 들뜬 생성물($\text{Oxyluciferin}^*$)을 직접 형성한다.
  flowchart TD
    subgraph INC ["1. 열복사 (Incandescence / 흑체복사)"]
        T1["고온 가열 (T > 2,500 K)<br/>분자 진동 및 병진 운동의 무차별 열여기"] --> T2["플랑크 분포 연속 스펙트럼 방출<br/>(>90% 적외선 열손실 / 단백질 변성)"]
    end

    subgraph FL ["2. 광루미네선스: 형광 (GFP) 및 인광"]
        F1["외부 여기 광자 흡수 (hν_ex: UV / 청색광)<br/>바닥상태 S0 → 들뜬 단일항 S1 (10^-15 s)"] --> F2["진동 이완 (10^-12 s)<br/>스토크스 이동 (λ_em > λ_ex)"]
        F2 --> F3["스핀 허용 형광 방출 S1 → S0 + hν_em (10^-9 s)<br/>*외부 광원 없이는 암흑 속에서 발광 불가*"]
        F2 -.->|"계간교차 (ISC: ΔS = 1)"| F4["스핀 금지 인광 방출 T1 → S0 + hν_ph<br/>(밀리초~수 시간 잔광)"]
    end

    subgraph BL ["3. 생물발광 (Bioluminescence: 300 K 냉광)"]
        B1["루시페린 + O2 (+ ATP 또는 Ca2+)<br/>루시페레이스 효소 활성 부위 결합 (300 K)"] --> B2["고변형 4원환 과산화물 중간체 형성<br/>(1,2-다이옥세타논 / 1,2-Dioxetanone)"]
        B2 --> B3["CIEEL 협동 개열 및 화학적 여기 (-CO2)<br/>S0 → S1* 원뿔 교차 (Conical Intersection)"]
        B3 --> B4["들뜬 옥시루시페린* (S1) → S0 + hν<br/>(외부 광원 불필요, 양자 수율 Φ_BL 41–88%)"]
    end

    subgraph BRET_BOX ["4. 생물발광 공명 에너지 전달 (BRET: 해파리 Aequorea victoria)"]
        BR1["에쿼린 Aequorin (코엘렌테라진 + Ca2+)<br/>화학적 여기로 청색 S1* 주개 생성 (470 nm)"] -->|"Förster 쌍극자-쌍극자 결합 (r < 5 nm)<br/>비방사 에너지 전달 E = 1/(1+(r/R0)^6)"| BR2["녹색형광단백질 (GFP) 발색단 여기<br/>녹색 광자 방출 (λ = 509 nm)"]
    end
2.2 시모무라 오사무(2008 노벨 화학상)와 해파리의 BRET 메커니즘
2008년 노벨 화학상 수상자 시모무라 오사무(Osamu Shimomura) 박사는 해파리(Aequorea victoria) 연구에서 살아있는 해파리는 녹색 빛($\lambda_{\max} = 509\,\text{nm}$)을 내지만, 정제된 발광 단백질 에쿼린(Aequorin, 코엘렌테라진 포함)에 $\text{Ca}^{2+}$를 가하면 청색 빛($\lambda_{\max} = 470\,\text{nm}$)이 나온다는 사실을 발견했다. 해파리 발광기 내에서는 에쿼린과 녹색형광단백질(GFP, Ser65–Tyr66–Gly67 발색단)이 $r \approx 2\text{–}5\,\text{nm}$ 거리로 결합해 있으며, 에쿼린에서 화학적으로 여기된 $\text{Coelenteramide}^*$의 에너지가 생물발광 공명 에너지 전달(BRET, Förster 쌍극자-쌍극자 상호작용)을 통해 비방사적으로 GFP에 전달되어 $509\,\text{nm}$ 녹색 형광으로 방출된다:
$$E_{\text{BRET}} = \frac{1}{1 + \left(\dfrac{r}{R_0}\right)^6}, \qquad R_0^6 \propto \kappa^2 \, \Phi_D \, n^{-4} \int_0^\infty F_D(\lambda)\, \varepsilon_A(\lambda)\, \lambda^4 \, d\lambda$$제3장: 반딧불이 루시페린-루시페레이스 반응의 양자화학과 CIEEL 메커니즘
반딧불이(Photinus pyralis, Luciola)의 발광 반응은 기질 D-루시페린(D-Luciferin), 효소 루시페레이스($61\,\text{kDa}$), $\text{ATP}$, $\text{Mg}^{2+}$, $\text{O}_2$에 의해 4단계로 진행된다:
- 단계 1: 아데닐화(기질 활성화) — ATP 에너지 오해 바로잡기 $$\text{D-Luciferin} + \text{ATP} \xrightarrow{\text{Luciferase, Mg}^{2+}} \text{E}\cdot\text{D-Luciferyl-AMP} + \text{PP}_i$$ 핵심 열역학적 오해 교정: ATP 가수분해 자유 에너지($\Delta G^{\circ\prime} \approx -30.5\,\text{kJ/mol}$)는 $560\,\text{nm}$ 광자 에너지($214\,\text{kJ/mol}$)의 7분의 1에 불과하므로 광자의 에너지원이 아니다! ATP는 카복실기($-\text{COO}^-$)를 전자 끌개 그룹인 $-\text{CO-AMP}$로 전환하여 티아졸린 고리 C4 양성자의 $pK_a$를 낮추고 우수한 이탈기($-\text{AMP}$)를 도입하는 속도론적 활성화제(화학적 프라이머) 역할을 한다.
- 단계 2: 단일전자전달(SET) 산소화 및 고변형 4원환 ‘1,2-다이옥세타논’ 형성 탈양성자화된 C4 탄소 음이온이 삼중항 산소($^3\text{O}_2$)와 단일전자전달(SET)을 통해 반응하여 과산화수소 중간체를 만들고, 분자 내 친핵성 치환으로 $\text{AMP}$가 이탈하면서 극도로 뒤틀린 4원환 과산화물 1,2-다이옥세타논(1,2-Dioxetanone)이 형성된다.
- 단계 3: CIEEL / CTIL 화학적 여기와 궤도 대칭성 원뿔 교차 1,2-다이옥세타논이 개열하여 옥시루시페린(Oxyluciferin)과 초안정 분자인 이산화탄소($\text{CO}_2$)로 분해될 때, 4원환 고리 변형 에너지($\sim 110\,\text{kJ/mol}$) 해방과 약한 $\text{O}-\text{O}$ 결합 파열 및 두 개의 강한 $\text{C}=\text{O}$ 이중결합 생성으로 인해 단번에 $\Delta H \approx -280\text{ to }-320\,\text{kJ/mol}$의 에너지가 방출된다. Woodward–Hoffmann 궤도 대칭성 규칙과 CIEEL(화학 개시 전자교환 발광) / CTIL(전하 이동 유도 발광) 메커니즘에 따르면, 벤조티아졸 고리의 탈양성자화된 페놀레이트 음이온($-\text{O}^-$)에서 다이옥세타논의 $\sigma^*(\text{O}-\text{O})$ 반결합 궤도로 분자 내 전자 이동이 일어난다. 결합이 늘어날 때 바닥상태 $S_0$ 퍼텐셜 에너지면은 대칭성 금지로 인해 급격히 상승하여 들뜬 단일항 $S_1$ 퍼텐셜면과 원뿔 교차(Conical Intersection)를 일으킨다. $\text{CO}_2$가 떨어져 나가는 순간 역전자 이동이 전자를 옥시루시페린의 $\text{LUMO}(\pi^*)$로 직접 주입하여, 분자는 바닥상태가 아닌 들뜬 단일항 상태 $\text{Oxyluciferin}^*(S_1)$로 탄생한다!
- 단계 4: 광자 방출, 양자 수율($\Phi_{\text{BL}}$) 및 발광색 튜닝 $$\text{Oxyluciferin}^*(S_1) \longrightarrow \text{Oxyluciferin}(S_0) + h\nu \quad (\lambda_{\max} \approx 560\,\text{nm}), \qquad \Phi_{\text{BL}} = \Phi_{\text{chem}} \times \Phi_{\text{ex}} \times \Phi_{\text{fl}}$$ 정밀 적분구 절대 측정 결과 반딧불이 루시페레이스의 $\Phi_{\text{BL}}$은 pH 8.5에서 $41.0 \pm 7.4\%$이며, 화학적 여기 효율 $\Phi_{\text{ex}}$는 $60\text{–}90\%$에 달한다(Ando et al., 2008, Nature Photonics). 발광색 튜닝($538\,\text{nm}$ 녹색 ~ $622\,\text{nm}$ 적색): 동일한 D-루시페린을 쓰는데도 pH가 산성(pH 6.0)이 되거나 변이가 일어나면 발광색이 $560\,\text{nm}$ 황록색에서 $615\,\text{nm}$ 적색으로 이동한다(적색 이동 / Bathochromic Shift). Nakatsu 등(2006, Nature)은 효소 활성 부위의 Ile288 게이트 잔기가 들뜬 옥시루시페린을 단단히 조여 $\text{C}2-\text{C}2^\prime$ 회전 이완(TICT)과 물 분자 침투를 막아 고에너지 황록색 광자를 방출하게 하며, 이 패킹이 느슨해지면 극성 이완으로 인해 에너지가 낮아져 적색 광자가 방출됨을 규명했다.
  flowchart TD
    S1["<b>Step 1: 아데닐화 (기질 활성화)</b><br/>D-루시페린 + ATP + Mg2+ → 루시페릴-AMP + PPi<br/>(C4-H pKa 감소 및 이탈기 -AMP 도입)"]
    S2["<b>Step 2: 산소화 및 과산화 고리화</b><br/>C4 탄소 음이온 + O2 (SET) → 하이드로퍼옥사이드<br/>→ 분자 내 친핵성 치환 (-AMP) → <b>1,2-다이옥세타논 4원환</b>"]
    S3["<b>Step 3: CIEEL / CTIL 화학적 여기</b><br/>페놀레이트 (-O-)에서 σ*(O-O)로 전자 이동<br/>→ 협동 탈탄산 (-CO2, ΔH ≈ -300 kJ/mol)<br/>→ S0/S1 원뿔 교차 → <b>들뜬 옥시루시페린* (S1, π*)</b>"]
    S4["<b>Step 4: 광자 방출 및 발광색 튜닝</b><br/>Oxyluciferin*(S1) → Oxyluciferin(S0) + hν (Φ_BL ≈ 41–88%)"]

    C1["<b>황록색 발광 (λ ≈ 550–560 nm, pH 8.0)</b><br/>Ile288 게이트의 소수성·강직성 밀폐 캐비티<br/>TICT 회전 및 극성 이완 억제 → 높은 ΔE"]
    C2["<b>적색 발광 (λ ≈ 615–622 nm, 산성 pH 6.0 / 변이체)</b><br/>활성 포켓 이완·물 분자 침투 및 쌍극자 이완<br/>S1* 에너지 안정화 → 장파장 이동 (Bathochromic Shift)"]

    S1 --> S2 --> S3 --> S4
    S4 --> C1
    S4 --> C2
제4장: 40~90회 이상 독립 진화한 생물발광의 다양성과 심해 생태계
생물발광은 생명의 역사에서 최소 40회에서 90회 이상 독립적으로 진화한 수렴 진화(Convergent Evolution)의 대표 사례다(Haddock et al., 2010). 이는 초기 호기성 생물이 활성산소종(ROS, $\text{O}_2^{\bullet-}$)을 해독하던 항산화 색소 반응에서 유래했다.
- 해양 코엘렌테라진(Coelenterazine) 및 바다반딧불이(Vargulin) 시스템: 수심 $200\text{–}1,000\,\text{m}$ 중층심해 생물의 $75\%$ 이상이 발광하며, 9개 이상의 동물문이 코엘렌테라진을 사용한다(어류와 오징어는 먹이사슬을 통해 섭취). 발광 파장 $\lambda_{\max} = 450\text{–}490\,\text{nm}$ 청색광은 해수의 광학 투과 창과 정확히 일치한다.
- 와편모조류(야광충 Noctiluca)의 전단 응력 센서와 전압 개폐 양성자 채널($\text{H}_v1$): 파도나 포식자의 유체 전단 응력(Shear Stress)이 가해지면 액포막 탈분극으로 전압 개폐 양성자 채널($\text{H}_v1$)이 열려 발광 과립(Scintillon) 내부 pH가 $8.0 \to 6.0$으로 급락하고, 루시페린 결합 단백질(LBP)이 기질을 방출하여 $100\,\text{ms}$ 동안 $475\,\text{nm}$ 섬광을 터뜨린다(1차 포식자를 상위 포식자에게 노출시키는 ‘도난 경보기 가설 / Burglar Alarm’).
- 발광 박테리아
luxCDABEG오페론과 쿼럼 센싱(Quorum Sensing): 하와이안 밥테일 오징어(Euprymna scolopes)나 초롱아귀에 공생하는 Aliivibrio fischeri는 $\text{FMNH}_2$와 긴사슬 알데하이드($\text{RCHO}$)를 산화시켜 $490\,\text{nm}$ 빛을 내며, 신호 분자 자가유도물질(AHL, $\text{LuxI}/\text{LuxR}$ 시스템)을 통한 쿼럼 센싱으로 고밀도($>10^{10}\,\text{cells/mL}$)에서만 발광한다. - 발광 버섯(Mycena, Neonothopanus)의 카페산(Caffeic Acid) 회로: 4가지 효소(
HispS,H3H,Luz,CPH)를 이용해 식물·균류 공통 대사산물인 카페산을 3-하이드록시히스피딘으로 전환하여 $520\text{–}530\,\text{nm}$ 녹색 빛을 내고 다시 카페산으로 재활용한다(Kotlobay et al., 2018, PNAS). - 심해 카운터일루미네이션(역조명 위장)과 적색 스나이퍼 심해어(Malacosteus niger): 샛비늘치와 반딧불오징어는 복부 발광기로 하강하는 햇빛과 동일한 청색광을 아래로 비춰 그림자를 지우는 스텔스 위장을 수행하며, 심해어 Malacosteus niger는 $>700\,\text{nm}$ 원적외선/적색 발광기와 클로로필 유도체 망막 색소를 결합해 먹잇감에게 보이지 않는 적외선 야간투시경을 사용한다.
제5장: 의료 생체 이미징(AkaBLI), 위생 검사 및 자가 발광 식물 응용
- 생체 생물발광 이미징(In Vivo BLI)과 근적외선 AkaBLI 시스템: 외부 여기광이 필요 없어 자가형광 노이즈가 0에 가까운 BLI의 장점을 극대화하기 위해, 이화학연구소(RIKEN) 미야와키 아츠시 팀(Iwano et al., 2018, Science)은 합성 기질 AkaLumine-HCl과 변이 효소 AkaLuc을 결합해 생체 투과 창인 근적외선 영역($\lambda_{\max} = 677\,\text{nm}$)에서 기존 대비 1,000배 높은 감도를 달성, 살아있는 마우스 폐 속의 단일 전이 암세포 추적과 영장류 뇌 신경 활동 비침습 기록에 성공했다.
- 초고휘도 NanoLuc 및 ATP 위생 루미노미터: 심해 새우 유래의 소형 $19\,\text{kDa}$ NanoLuc(기질 Furimazine)은 반딧불이보다 150배 밝아 신약 개발 및 NanoBRET 분석에 쓰이며, 반딧불이 효소의 $I \propto [\text{ATP}]$ 선형성을 이용한 휴대용 ATP 측정기는 수술 기구 및 식품 공장의 미생물 오염($10^{-15}\text{–}10^{-18}\,\text{mol}$ ATP)을 10초 만에 정량한다.
- 자가 발광 식물(Glowing Plants): 모든 관다발식물이 리그닌 합성을 위해 다량의 카페산을 생성한다는 점에 착안하여, 균류의 카페산 발광 회로 4개 유전자를 담배와 페튜니아(Firefly Petunia)에 도입함으로써 외부 기질 공급 없이 평생 스스로 녹색 빛을 내는 자가 발광 식물이 탄생했다(Mitiouchkina et al., 2020, Nature Biotechnology).