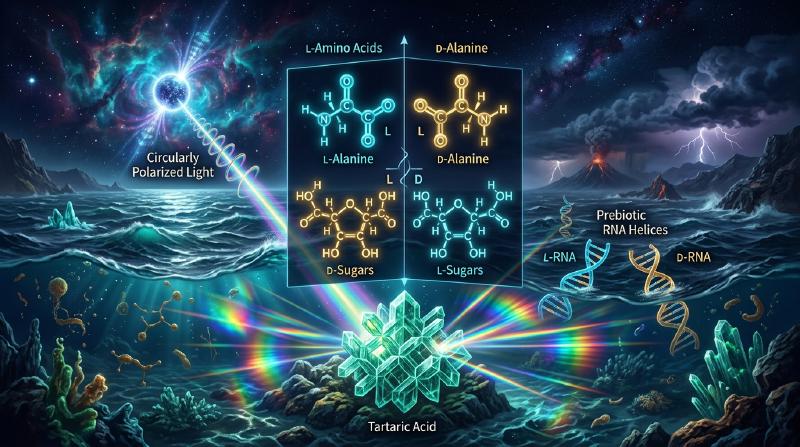
Perhatikan kedua tangan Anda. Tangan kiri dan tangan kanan Anda tersusun atas komponen yang persis sama: lima jari, buku-buku tulang yang serupa, dan proporsi yang identik. Namun, bagaimanapun Anda memutar tangan kiri Anda di dalam ruang tiga dimensi, tangan kiri tidak akan pernah bisa ditumpuk tepat secara sempurna di atas tangan kanan dengan telapak menghadap ke arah yang sama. Keduanya adalah bayangan cermin yang tidak dapat saling berhimpit (non-superimposable mirror images). Sifat geometris fundamental ini disebut kiralitas (berasal dari bahasa Yunani cheir yang berarti tangan).
Dalam reaksi kimia sintesis standar dari bahan awal yang akiral, hukum termodinamika secara alamiah menghasilkan campuran 50% molekul tangan kanan dan 50% tangan kiri, yang dikenal sebagai rasemat. Campuran rasemat bersifat tidak aktif secara optik.
Namun, dunia kehidupan di Bumi selama 3,8 miliar tahun secara radikal melanggar simetri ini melalui fenomena homokiralitas biologis:
- Protein: Seluruh enzim dan mesin molekuler penyusun sel hidup dibangun secara eksklusif oleh L-asam amino (bentuk kidal).
- Asam Nukleat: Rangka heliks DNA dan RNA tersusun murni oleh D-gula (D-ribosa dan D-deoksiribosa, bentuk tangan kanan).
Mengapa sup purba kehidupan di Bumi purba menetapkan pilihan tunggal pada L-asam amino dan D-gula, menyingkirkan dunia cermin sebaliknya?
  flowchart TD
    subgraph CHIRALITY_ID ["Konsep Kiralitas dan Homokiralitas Biologis"]
        direction TB
        MOL["Molekul Kiral (Karbon Asimetris Sp3)"] --> MIRROR["Refleksi Cermin"]
        MIRROR --> ENANT["Pasangan Enansiomer (Bayangan Tak Tumpang Tindih)"]

        ENANT --> PROP1["Sifat Fisik Akiral Identik (Titik Didih, Titik Leleh, Kerapatan)"]
        ENANT --> PROP2["Aktivitas Optik: Memutar bidang cahaya terpolarisasi (+ / -)"]
        ENANT --> PROP3["Interaksi Reseptor Kiral: Perbedaan bau, rasa, dan efek farmakologis"]

        ENANT --> HOMO["Biosfer Bumi: Homokiralitas Mutlak 100% (L-Asam Amino & D-Gula)"]
    end
1. Kelahiran Stereokimia: Louis Pasteur dan Kristal Asam Tartrat
Sejarah kiralitas molekuler bermula pada tahun 1848 lewat kecermatan ilmuwan muda Prancis berusia 26 tahun, Louis Pasteur. Pada masa itu, para kimiawan bingung menghadapi keanehan asam tartrat. Asam tartrat yang mengendap pada tong fermentasi anggur mampu memutar bidang cahaya terpolarisasi ke arah kanan (dekstrorotatori, $(+)$). Sementara itu, asam rasemat sintetis yang berumus kimia identik sama sekali tidak memutar cahaya.
Pasteur mengkristalkan garam natrium amonium paratartrat di bawah suhu 28 °C. Di bawah mikroskop, ia mengamati bahwa kristal-kristal tersebut memiliki bidang asimetris (hemihedral) yang terbagi menjadi dua kelompok berlawanan arah.
Dengan bantuan pinset dan kaca pembesar, Pasteur memilah kristal-kristal tersebut menjadi dua tumpukan:
- Larutan kristal “tangan kanan” memutar cahaya ke arah kanan ($+$).
- Larutan kristal “tangan kiri” memutar cahaya dengan sudut yang persis sama ke arah kiri ($-$).
- Ketika kedua larutan dicampur dalam proporsi seimbang, rotasi optik saling meniadakan, menghasilkan campuran rasemat.
Pasteur menyimpulkan bahwa asimetri bentuk kristal makroskopis mencerminkan asimetri internal susunan atom di dalam molekul itu sendiri. Pasteur menegaskan: «Asimetri adalah tanda khas kehidupan».
| |
2. Model Tiga Titik dan Tragedi Thalidomide
Mengapa sistem biologi merespons secara amat kontras terhadap dua molekul enansiomer yang memiliki bobot molekul dan kelarutan identik? Hal ini disebabkan oleh sifat kiral reseptor biologis di dalam tubuh manusia yang tersusun dari L-asam amino.
Model interaksi tiga titik Easson-Stedman (1933) menjelaskan bahwa untuk memicu respons farmakologis, tiga gugus fungsi tertentu pada obat harus menempati tiga kantung komplementer pada reseptor. Enansiomer pasangannya hanya mampu mencocokkan dua gugus, sementara gugus ketiga bertabrakan atau mengarah ke ruang kosong.
  flowchart LR
    subgraph THREE_POINT_ID ["Model Interaksi Tiga Titik Easson-Stedman"]
        direction TB
        REC["Kantung Reseptor Kiral (Titik A, B, C)"]
        ENANT_R["Enansiomer R: Ketiga gugus terpasang presisi"] -->|Respons Biologis Maksimal| REC
        ENANT_S["Enansiomer S: Gugus ketiga salah orientasi / tabrakan"] -->|Inaktif atau Efek Teratogenik| REC
    end
Bau dan Rasa Enansiomer
- (R)-(-)-karvon berinteraksi dengan reseptor penciuman hidung menimbulkan sensasi aroma segar spearmint.
- (S)-(+)-karvon menghasilkan aroma jintan manis (caraway).
- Demikian pula, (R)-(+)-limonen beraroma jeruk manis, sedangkan (S)-(-)-limonen berbau tajam seperti getah pinus dan terpentin.
Tragedi Thalidomide dan Reseptor Cereblon
Contoh paling memilukan dari kekeliruan stereokimia dalam dunia medis adalah tragedi thalidomide pada akhir era 1950-an. Dipasarkan sebagai obat penenang racemat untuk meredakan mual kehamilan, thalidomide menyebabkan kelahiran lebih dari 10.000 bayi dengan cacat bawaan berat (fokomelia).
Studi biologi struktural modern mengungkap:
- Bentuk (R) berkhasiat sebagai sedatif penenang yang aman.
- Bentuk (S) mengikat protein Cereblon (CRBN) yang merupakan subunit enzim E3 ubiquitin ligase. Ikatan ini memicu degradasi faktor transkripsi SALL4 yang krusial bagi pertumbuhan anggota tubuh janin.
Bahkan andai produsen saat itu hanya memberikan isomer (R) murni, bencana tetap tak terhindarkan: pada pH darah manusia ($7{,}4$), atom hidrogen pada karbon kiral mengalami tautomeri cepat yang menyebabkan rasemisasi lengkap in vivo dalam waktu 4 hingga 5 jam.
3. Mengapa Kehidupan Membutuhkan Homokiralitas? Kendala Biofisika
Bisakah sebuah sel hidup purba bertahan hidup menggunakan campuran acak L- dan D-asam amino? Biofisika molekuler menjawab dengan tegas: mustahil.
  flowchart TD
    subgraph RAMA_ID ["Homokiralitas dan Pelipatan Protein"]
        direction TB
        HOMO_PROT["Polipeptida 100% Homokiral L"] --> HELIX["Heliks alfa tangan kanan stabil (3.6 residu/putaran)"]
        HOMO_PROT --> SHEET["Lembaran beta berlipat teratur dengan ikatan H kuat"]
        HELIX --> NATIVE["Struktur tersier fungsional & kantung katalisis aktif"]

        HETERO_PROT["Polipeptida Heterokiral (Campuran L dan D)"] --> CLASH["Tabrakan sterik pada plot Ramachandran"]
        HETERO_PROT --> COIL["Kekusutan acak (Random Coil) tanpa bentuk teratur"]
        COIL --> DEAD["Kehilangan kemampuan katalisis enzimatik"]
    end
Diagram Ramachandran dan Heliks Alfa
Sudut ikatan dihedral peptida $\phi$ (phi) dan $\psi$ (psi) membatasi pelipatan rantai protein. Dalam diagram Ramachandran, L-asam amino secara alami mengisi area energi terendah yang membentuk struktur heliks $\alpha$ tangan kanan, ditopang oleh ikatan hidrogen antara gugus $C=O$ residu $i$ dan gugus $N-H$ residu $i+4$.
Penyisipan satu D-asam amino ke dalam rantai L memproyeksikan rantai samping ke ruang terlarang, memutus kontinuitas ikatan hidrogen dan meruntuhkan struktur sekunder. Tanpa bentuk tiga dimensi yang kaku dan teratur, enzim tidak memiliki spesifisitas katalitik.
Hambatan Silang Kiral pada Replikasi RNA
Dalam eksperimen asal usul kehidupan oleh Leslie Orgel, ditemukan fenomena penghambatan silang kiral (Chiral Cross-Inhibition). Ketika cetakan RNA D murni dicoba direplikasi menggunakan campuran nukleotida rasemat, nukleotida L menempel pada ujung rantai tetapi menghentikan reaksi elongasi lebih lanjut. Ketiadaan kemurnian kiral secara total mematikan proses replikasi genetik non-enzimatik.
4. Teori Pemecah Simetri Purba
Bagaimana kelebihan awal enantiomer L terbentuk di Bumi sebelum kehidupan bermula? Terdapat dua hipotesis utama:
  flowchart TD
    subgraph HYPO_ID ["Hipotesis Pemecahan Simetri Kiral"]
        direction TB
        ASTRO["Astrofisika: Cahaya Terpolarisasi Melingkar (CPL) di Nebula"] --> METEORIT["Fotolisis asimetris selektif -> Kelebihan L 2-18% pada meteorit Murchison"]

        WEAK["Fisika Partikel: Pelanggaran Paritas Gaya Lemah (Pertukaran Boson Z0)"] --> PVED["Perbedaan energi mikroskopis (PVED ~ 10^-14 J/mol) menguntungkan bentuk L"]

        MINERAL["Geologi: Adsorpsi stereospesifik pada kristal kiral (kuarsa, kalsit)"] --> GEO_ADS["Akumulasi lokal pada permukaan mineral purba"]

        METEORIT --> AMPLI["Amplifikasi Autokatalitik Non-Linear (Model Frank & Reaksi Soai)"]
        PVED --> AMPLI
        GEO_ADS --> AMPLI
        AMPLI --> FINAL_ID["100% Homokiralitas Sempurna pada Kimia Prebiotik"]
    end
Hipotesis Kosmis: Cahaya Terpolarisasi Melingkar Antarbintang
Pada tahun 1969, meteorit karbonat Murchison mendarat di Australia. Uji spektrometri mengungkap lebih dari 70 jenis asam amino. Menariknya, asam amino non-biologis seperti isovalin menunjukkan kelebihan enantiomer L sebesar 2% hingga 18%.
Di daerah pembentukan bintang raksasa, radiasi ultraviolet dihamburkan oleh debu antarbintang yang teratur oleh medan magnet kosmik, menciptakan cahaya terpolarisasi melingkar (CPL). Fotolisis asimetris oleh radiasi CPL ini menghancurkan salah satu enantiomer lebih cepat dibandingkan pasangannya, meninggalkan residu L-asam amino yang kemudian jatuh ke Bumi purba melalui komet dan meteorit.
Hipotesis Gaya Lemah: Pelanggaran Paritas Fisika Subatomik
$$\Delta E_{\text{PVED}} \approx 10^{-14} \text{ hingga } 10^{-16} \, \text{J/mol}$$Meski selisih ini teramat kecil, dalam sistem terbuka non-ekuilibrium, bias konstan ini dapat memicu transisi fase makroskopis global.
5. Mekanisme Penguatan Asimetri: Model Frank dan Reaksi Soai
Kelebihan awal sebesar beberapa persen belum cukup untuk melahirkan kehidupan. Diperlukan penguatan non-linear hingga mencapai kemurnian 100%.
Model Teori Frank (1953)
Fisikawan Frederick Charles Frank menyusun model kinetika yang memukau:
- Autokatalisis Asimetris: Masing-masing enantiomer mempercepat sintesis dirinya sendiri ($A + L \rightarrow 2L$).
- Penghambatan Bersama: Bila molekul L bertumbukan dengan D, keduanya bergabung secara ireversibel membentuk dimer inaktif ($L + D \rightarrow LD$).
Keadaan rasemat bersifat labil. Fluktuasi sekecil apa pun akan menyebabkan spesies yang unggul memusnahkan rivalnya hingga habis total.
  flowchart LR
    subgraph DYNAMICS_ID ["Skema Reaksi Model Frank"]
        direction TB
        A["Prekursor Akiral A"] -->|Autokatalisis L| 2L["2 Enansiomer L"]
        A -->|Autokatalisis D| 2D["2 Enansiomer D"]
        2L -.->|Penghambatan Silang| INERT["Dimer Heterokiral Inaktif (L-D)"]
        2D -.->|Penghambatan Silang| INERT
    end
Reaksi Soai: Pembuktian Eksperimental
Pada tahun 1995, kimiawan Jepang Kenso Soai berhasil membuktikan model Frank di laboratorium. Dalam alkilasi pirimidin-5-karbaldehida dengan diisopropilzink, produk seng alkoksida bertindak sebagai autokatalis kiral. Dengan memberikan pemantik enantiomer berlebih awal hanya sebesar $0{,}00005\%$ ee (50 ppb), sistem secara mandiri memperkuat kemurnian optik hingga melampaui $99{,}5\%$ ee!
6. Biologi Sintesis: Harapan dan Ancaman ‘Kehidupan Cermin’ (Mirror Life)
Apa yang akan terjadi bila ilmuwan berhasil menciptakan sel hidup fungsional yang sepenuhnya tersusun atas D-asam amino dan L-gula?
Pencapaian Terkini
Tim peneliti di bawah pimpinan Ting Zhu telah memproduksi enzim D-DNA polimerase sintetis yang mampu mereplikasi L-DNA dan mentranskripsi L-RNA dalam tabung reaksi.
Manfaat Terapi dan Ancaman Biosafety
- Potensi Medis: Molekul cermin seperti Spiegelmer (aptamer L-RNA) dan D-peptida sama sekali tidak dikenali oleh enzim protease tubuh, menjadikannya kandidat obat kanker dan autoimun yang sangat tahan lama.
- Bahaya Keamanan Hayati: Bakteri cermin yang lepas ke alam bebas berpotensi menjadi ancaman kepunahan ekologis. Sistem kekebalan tubuh mamalia tidak mampu mendeteksi antigen cermin, dan tidak ada bakteriofag alami yang dapat memangsanya, sehingga mikroba cermin dapat mengonsumsi sumber daya alam tanpa kendali ekologis.
Kesimpulan
Homokiralitas bukanlah kebetulan sejarah, melainkan prasyarat fisik mutlak bagi arsitektur molekuler kehidupan. Menelusuri jejak tangan biologis ini mengantarkan kita pada pemahaman mendalam tentang bagaimana hukum fisika alam semesta menenun tatanan kehidupan dari kekacauan materi purba.