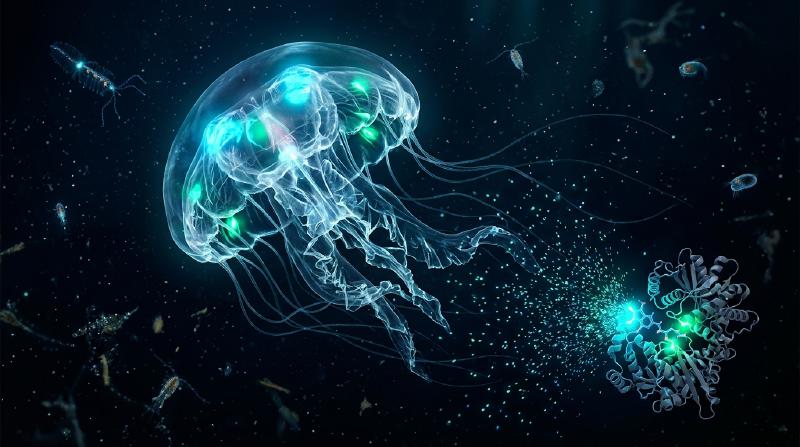
Di malam musim panas yang tenang, ribuan kunang-kunang (Photinus pyralis, Luciola cruciata) melayang di kegelapan bagaikan lentera zamrud. Sementara itu, pada kedalaman $1.000\,\text{m}$ di bawah permukaan laut — di zona mesopelagik dan batipelagik yang gelap gulita tanpa satu pun foton matahari — lebih dari $75\%$ organisme pelagik, mulai dari cumi-cumi vampir (Vampyroteuthis infernalis) dan ikan lentera (Myctophidae) hingga ikan sungut ganda (anglerfish) dan ubur-ubur kristal (Aequorea victoria), memancarkan kilatan cahaya biru dan hijau yang memukau.
Sumber cahaya tradisional seperti nyala lilin ($\sim 1.700\,\text{K}$) atau filamen tungsten bola lampu pijar ($\sim 2.800\,\text{K}$) membutuhkan suhu ekstrem untuk memancarkan cahaya tampak, dengan lebih dari $90\%$ energinya terbuang sebagai panas inframerah. Namun, jika Anda memegang kunang-kunang yang sedang bersinar di telapak tangan, perutnya terasa sejuk pada suhu kamar ($T \approx 295\text{–}300\,\text{K}$ atau $22\text{–}27\,^\circ\text{C}$). Faktanya, protein dan enzim biologis akan mengalami denaturasi termal ireversibel di atas suhu $315\text{–}323\,\text{K}$ ($42\text{–}50\,^\circ\text{C}$).
Bagaimana makhluk hidup melampaui hukum radiasi termal untuk mengubah energi ikatan kimia secara langsung menjadi keadaan tereksitasi elektronik singlet ($S_1^*$) pada suhu $300\,\text{K}$, menghasilkan “cahaya dingin” (Cold Light) dengan hasil kuantum mencapai $41\%\text{–}88\%$?
Bab 1: Radiasi Termal (Inkandesensi) vs. Luminesensi
1.1 Jurang Energi Antara Foton Tampak dan Energi Termal Kamar ($k_B T$)
Dalam spektrum cahaya tampak ($\lambda = 400\text{–}700\,\text{nm}$), energi satu foton dan energi molarnya diberikan oleh persamaan Planck:
$$E_{\text{photon}} = h\nu = \frac{hc}{\lambda} \approx \frac{1239,8\,\text{eV}\cdot\text{nm}}{\lambda(\text{nm})}$$- Cahaya kuning-hijau kunang-kunang ($\lambda \approx 560\,\text{nm}$): $E_{\text{photon}} \approx 2,21\,\text{eV}$, $E_{\text{mol}} = N_A h\nu \approx 213,6\,\text{kJ/mol}$.
- Cahaya biru organisme laut dalam ($\lambda \approx 470\,\text{nm}$): $E_{\text{photon}} \approx 2,64\,\text{eV}$, $E_{\text{mol}} \approx 254,5\,\text{kJ/mol}$.
Sebaliknya, energi termal rata-rata $k_B T$ pada suhu kamar ($T = 300\,\text{K}$) hanyalah:
$$k_B T \big|_{T=300\,\text{K}} \approx 0,02585\,\text{eV}, \qquad RT \big|_{T=300\,\text{K}} \approx 2,494\,\text{kJ/mol}$$Menciptakan satu foton cahaya tampak membutuhkan energi hampir 100 kali lipat dari rata-rata kuantum energi termal pada suhu kamar! Pada kesetimbangan termal $300\,\text{K}$, faktor probabilitas Boltzmann untuk mengeksitasi keadaan $\Delta E = 2,21\,\text{eV}$ secara spontan adalah $\exp(-\Delta E / k_B T) = \exp(-85,5) \approx 7,4 \times 10^{-38}$ — secara fisik sama dengan nol.
1.2 Hukum Radiasi Planck dan Hukum Pergeseran Wien
Radiansi spektral benda hitam $B_\lambda(\lambda, T)$ mengikuti Hukum Planck, panjang gelombang puncaknya mengikuti Hukum Pergeseran Wien, dan daya pancar totalnya mengikuti Hukum Stefan-Boltzmann:
$$B_\lambda(\lambda, T) = \frac{2hc^2}{\lambda^5} \frac{1}{\exp\left(\dfrac{hc}{\lambda k_B T}\right) - 1}, \qquad \lambda_{\max} \cdot T = 2,8978 \times 10^{-3}\,\text{m}\cdot\text{K}, \qquad J = \sigma T^4$$Pada $T = 300\,\text{K}$, puncak pancaran berada di inframerah tengah ($\lambda_{\max} \approx 9,66\,\mu\text{m}$). Bahkan pada filamen tungsten $2.800\,\text{K}$, puncaknya masih berada di inframerah dekat ($\lambda_{\max} \approx 1.035\,\text{nm}$), membuang $>90\%$ energi listrik sebagai panas. Hanya fotosfer Matahari ($T \approx 5.778\,\text{K}$) yang mencapai $\lambda_{\max} \approx 501\,\text{nm}$.
1.3 Luminesensi (“Cahaya Dingin”): Eksitasi Selektif Kuantum Non-Termal
Diperkenalkan pada tahun 1888 oleh Eilhardt Wiedemann, luminesensi adalah pancaran cahaya non-termal di mana energi $2\text{–}3\,\text{eV}$ disuntikkan secara selektif ke transisi elektronik ($\text{HOMO} \to \text{LUMO}$, $S_0 \to S_1^*$) tanpa memanaskan medium di sekitarnya.
| Kategori Emisi | Sumber Eksitasi | Mekanisme Fisika-Kimia | Contoh Representatif | Suhu Operasi |
|---|---|---|---|---|
| Inkandesensi (Benda Hitam) | Agitasi termal ($k_B T$) | Eksitasi termal acak pada seluruh mode getaran | Matahari, api lilin, lampu pijar tungsten | $1.500\text{–}6.000\,\text{K}$ |
| Fluoresensi (Fotoluminesensi) | Absorpsi foton eksternal ($h\nu_{\text{ex}}$) | Peluruhan spin-diizinkan $S_1 \to S_0$ ($\tau \sim 10^{-9}\,\text{s}$) | Protein GFP (Aequorea), pigmen karang, stabilo | Suhu kamar ($\sim 300\,\text{K}$) |
| Fosforesensi | Absorpsi foton + Intersystem Crossing (ISC) | Peluruhan spin-terlarang $T_1 \to S_0$ ($\Delta S = 1, \tau \sim 10^{-3}\text{–}10^4\,\text{s}$) | Cat glow-in-the-dark ($\text{SrAl}_2\text{O}_4:\text{Eu}^{2+}$) | Suhu kamar ($\sim 300\,\text{K}$) |
| Elektroluminesensi | Medan listrik / injeksi pembawa muatan | Rekombinasi radiatif elektron dan hole | LED biru/putih ($\text{InGaN}$), layar OLED | Suhu kamar |
| Kemiluminesensi | Penataan ulang ikatan kimia eksotermik | Pembelahan peroksida yang langsung mengisi $S_1^*$ | Luminol forensik, glow stick oksalat | Suhu kamar |
| Bioluminesensi | Kemiluminesensi terkatalisis enzim | Oksidasi lusiferin oleh lusiferase via 1,2-dioksetanon | Kunang-kunang, Vargula, dinoflagellata, Vibrio, jamur | Fisiologis ($275\text{–}310\,\text{K}$) |
Bab 2: Bioluminesensi vs. Fluoresensi (GFP) vs. Fosforesensi dan Mekanisme BRET
Sangat penting untuk membedakan antara bioluminesensi dan biofluoresensi (seperti GFP):
- Fluoresensi (mis. GFP) adalah proses fotofisika yang wajib membutuhkan cahaya eksitasi eksternal ($h\nu_{\text{ex}}$, UV atau biru). Setelah menyerap foton ($10^{-15}\,\text{s}$) dan mengalami relaksasi vibrasi ($10^{-12}\,\text{s}$), molekul memancarkan foton dengan panjang gelombang lebih besar dalam skala nanodetik ($\tau \approx 10^{-9}\,\text{s}$, Pergeseran Stokes $\lambda_{\text{em}} > \lambda_{\text{ex}}$). Dalam kegelapan total tanpa lampu eksternal, organisme fluoresen sama sekali tidak dapat bersinar!
- Fosforesensi melibatkan Intersystem Crossing (ISC) dari keadaan singlet $S_1$ ($\uparrow\downarrow, S=0$) ke keadaan triplet $T_1$ ($\uparrow\uparrow, S=1$), yang transisinya $T_1 \to S_0$ terlarang secara spin ($\Delta S = 1$), menghasilkan pendaran selama milidetik hingga berjam-jam.
- Bioluminesensi adalah proses fotokimia (kemieksitasi) yang bekerja dalam kegelapan mutlak tanpa cahaya eksternal: oksidasi enzimatik lusiferin oleh lusiferase melintasi perpotongan permukaan energi potensial langsung menuju keadaan tereksitasi $\text{Oksilusiferin}^*(S_1)$.
  flowchart TD
    subgraph INC ["1. Inkandesensi (Radiasi Termal Benda Hitam)"]
        T1["Pemanasan Ekstrem (T > 2.500 K)<br/>Agitasi termal acak pada seluruh derajat kebebasan"] --> T2["Spektrum Kontinu Planck B_λ(T)<br/>(>90% terbuang sebagai panas IR; mematikan bagi protein)"]
    end

    subgraph FL ["2. Fotoluminesensi: Fluoresensi (GFP) & Fosforesensi"]
        F1["Absorpsi Foton Eksternal (hν_ex: UV / Biru)<br/>Keadaan Dasar S0 → Singlet Tereksitasi S1 (10^-15 s)"] --> F2["Relaksasi Vibrasi (10^-12 s)<br/>Pergeseran Stokes (λ_em > λ_ex)"]
        F2 --> F3["Fluoresensi Spin-Diizinkan S1 → S0 + hν_em (10^-9 s)<br/>*Gelap total tanpa cahaya eksternal!*"]
        F2 -.->|"Intersystem Crossing (ISC: ΔS = 1)"| F4["Fosforesensi Spin-Terlarang T1 → S0 + hν_ph<br/>(Pendaran 10^-3 s hingga berjam-jam)"]
    end

    subgraph BL ["3. Bioluminesensi ('Cahaya Dingin' pada 300 K)"]
        B1["Lusiferin + O2 (+ ATP atau Ca2+)<br/>Terikat pada Sisi Aktif Lusiferase pada 300 K"] --> B2["Cincin Peroksida Empat Anggota Bertegangan Tinggi<br/>(Intermediat 1,2-Dioksetanon)"]
        B2 --> B3["Pembelahan Serempak CIEEL & Kemieksitasi (-CO2)<br/>Perpotongan Permukaan Langsung S0 → S1*"]
        B3 --> B4["Oksilusiferin*(S1) → Oksilusiferin(S0) + hν<br/>(Tanpa cahaya eksternal; Φ_BL mencapai 41–88%)"]
    end

    subgraph BRET_BOX ["4. Bioluminescence Resonance Energy Transfer (BRET pada Aequorea victoria)"]
        BR1["Aequorin (Coelenterazine + Ca2+)<br/>Kemieksitasi menciptakan Donor Biru S1* (470 nm)"] -->|"Kopling Dipol-Dipol Förster (r < 5 nm)<br/>Transfer Non-Radiatif E = 1/(1+(r/R0)^6)"| BR2["Mengeksitasi Kromofor GFP (Ser65-Tyr66-Gly67)<br/>Memancarkan Foton Hijau (λ = 509 nm)"]
    end
2.2 Osamu Shimomura (Hadiah Nobel 2008) dan Kopling BRET Antara Aequorin dan GFP
Saat meneliti ubur-ubur Aequorea victoria (yang bersinar hijau pada $509\,\text{nm}$), Osamu Shimomura menemukan bahwa fotoprotein murni Aequorin (mengikat coelenterazine dan diaktifkan oleh $\text{Ca}^{2+}$) ternyata memancarkan cahaya biru ($\lambda_{\max} = 470\,\text{nm}$) di dalam tabung reaksi. Di organ cahaya ubur-ubur, Aequorin mentransfer energi eksitasinya secara non-radiatif pada jarak $r \approx 2\text{–}5\,\text{nm}$ ke Green Fluorescent Protein (GFP) melalui BRET (Bioluminescence Resonance Energy Transfer) via kopling dipol-dipol Förster:
$$E_{\text{BRET}} = \frac{1}{1 + \left(\dfrac{r}{R_0}\right)^6}, \qquad R_0^6 \propto \kappa^2 \, \Phi_D \, n^{-4} \int_0^\infty F_D(\lambda)\, \varepsilon_A(\lambda)\, \lambda^4 \, d\lambda$$Bab 3: Kimia Kuantum Reaksi Lusiferin–Lusiferase Kunang-Kunang
Reaksi di dalam peroksisom sel fotosit kunang-kunang (Photinus pyralis, Luciola) menggunakan D-lusiferin, enzim lusiferase ($61\,\text{kDa}$), $\text{ATP}$, $\text{Mg}^{2+}$, dan $\text{O}_2$ dalam empat tahap:
- Tahap 1: Adenilasi (Aktivasi Substrat) — Meluruskan Mitos Energi ATP $$\text{D-Lusiferin} + \text{ATP} \xrightarrow{\text{Lusiferase, Mg}^{2+}} \text{E}\cdot\text{D-Lusiferil-AMP} + \text{PP}_i$$ Koreksi termodinamika penting: Hidrolisis ATP ($\Delta G^{\circ\prime} \approx -30,5\,\text{kJ/mol}$) bukanlah penyuplai energi foton $560\,\text{nm}$ ($214\,\text{kJ/mol}$)! ATP berfungsi sebagai aktivator kinetik: mengubah gugus $-\text{COO}^-$ menjadi ester asil-adenilat ($-\text{CO-AMP}$), menurunkan $pK_a$ proton C4 secara drastis agar mudah membentuk karbanion, serta menyediakan gugus pergi yang sangat baik ($-\text{AMP}$).
- Tahap 2: Transfer Elektron Tunggal (SET), Oksigenasi, dan Siklisasi menjadi 1,2-Dioksetanon Karbanion C4 bereaksi dengan oksigen triplet ($^3\text{O}_2$) melalui SET membentuk hidroperoksida yang melepaskan $\text{AMP}$ lewat substitusi nukleofilik intramolekuler, menutup cincin peroksida empat anggota yang sangat tegang: 1,2-dioksetanon ($\alpha$-peroksilakton).
- Tahap 3: Mekanisme CIEEL / CTIL dan Perpotongan Kerucut (Conical Intersection) $S_0/S_1$ Dekomposisi 1,2-dioksetanon menjadi oksilusiferin dan $\text{CO}_2$ melepaskan $\Delta H \approx -280\text{ hingga }-320\,\text{kJ/mol}$ berkat pelepasan tegangan cincin ($\sim 110\,\text{kJ/mol}$), pemutusan ikatan lemah $\text{O}-\text{O}$ ($\sim 140\,\text{kJ/mol}$), dan pembentukan dua ikatan rangkap $\text{C}=\text{O}$ yang sangat stabil pada $\text{CO}_2$. Berdasarkan aturan simetri orbital Woodward–Hoffmann dan mekanisme CIEEL / CTIL, gugus fenolat terdeprotonasi ($-\text{O}^-$) mentransfer elektron ke orbital anti-ikatan $\sigma^*(\text{O}-\text{O})$. Karena pembelahan pada permukaan dasar $S_0$ terlarang secara simetri orbital, energi $S_0$ naik tajam dan memotong permukaan tereksitasi singlet $S_1$ pada perpotongan kerucut (Conical Intersection). Saat $\text{CO}_2$ lepas, transfer elektron balik mengisi langsung orbital $\text{LUMO}(\pi^*)$, melahirkan molekul langsung dalam keadaan tereksitasi singlet $\text{Oksilusiferin}^*(S_1)$!
- Tahap 4: Emisi Foton, Hasil Kuantum ($\Phi_{\text{BL}}$), dan Penalaan Warna $$\text{Oksilusiferin}^*(S_1) \longrightarrow \text{Oksilusiferin}(S_0) + h\nu \quad (\lambda_{\max} \approx 560\,\text{nm}), \qquad \Phi_{\text{BL}} = \Phi_{\text{chem}} \times \Phi_{\text{ex}} \times \Phi_{\text{fl}}$$ Pengukuran bola integrasi absolut menetapkan $\Phi_{\text{BL}} = 41,0 \pm 7,4\%$ pada pH 8,5 (Ando et al., 2008, Nature Photonics). Penalaan warna ($538\,\text{nm}$ hijau hingga $622\,\text{nm}$ merah): Nakatsu et al. (2006, Nature) membuktikan bahwa residu Ile288 bertindak sebagai gerbang hidrofobik kaku yang mencegah rotasi TICT dan masuknya air sehingga memancarkan cahaya kuning-hijau ($560\,\text{nm}$), sedangkan pada pH asam (6,0) atau mutan, rongga melonggar dan menstabilkan keadaan $S_1^*$ sehingga emisi bergeser ke merah ($615\,\text{nm}$, pergeseran batokromik).
  flowchart TD
    S1["<b>Tahap 1: Adenilasi (Aktivasi Substrat)</b><br/>D-Lusiferin + ATP + Mg2+ → D-Lusiferil-AMP + PPi<br/>(Menurunkan pKa C4-H & memasang gugus pergi -AMP)"]
    S2["<b>Tahap 2: Oksigenasi & Siklisasi Peroksida</b><br/>Karbanion C4 + O2 (SET) → Hidroperoksida<br/>→ Serangan intramolekuler (-AMP) → <b>Cincin 1,2-Dioksetanon</b>"]
    S3["<b>Tahap 3: Kemieksitasi CIEEL / CTIL</b><br/>Fenolat (-O-) menyumbangkan elektron ke σ*(O-O)<br/>→ Pembelahan serempak (-CO2, ΔH ≈ -300 kJ/mol)<br/>→ Perpotongan Kerucut S0/S1 → <b>Oksilusiferin*(S1, π*)</b>"]
    S4["<b>Tahap 4: Peluruhan Radiatif & Penalaan Warna</b><br/>Oksilusiferin*(S1) → Oksilusiferin(S0) + hν (Φ_BL ≈ 41–88%)"]

    C1["<b>Emisi Kuning-Hijau (λ ≈ 550–560 nm, pH 8,0)</b><br/>Rongga hidrofobik kaku tertutup (gerbang Ile288)<br/>Menekan puntiran TICT & relaksasi polar → ΔE Tinggi"]
    C2["<b>Emisi Merah (λ ≈ 615–622 nm, pH 6,0 / Mutan)</b><br/>Kantong fleksibel memungkinkan air masuk & relaksasi dipol<br/>Menstabilkan keadaan S1* → Pergeseran Batokromik"]

    S1 --> S2 --> S3 --> S4
    S4 --> C1
    S4 --> C2
Bab 4: Evolusi Konvergen (40–90+ Asal-Usul) dan Ekologi Laut Dalam
Bioluminesensi berevolusi secara independen antara 40 hingga lebih dari 90 kali (Haddock et al., 2010) dari sistem antioksidan pendetoksifikasi spesies oksigen reaktif (ROS):
- Sistem Coelenterazine dan Vargulin (Cypridina) Laut: Lebih dari $75\%$ organisme mesopelagik bercahaya. Coelenterazine digunakan di lebih dari sembilan filum hewan (sering diperoleh melalui rantai makanan) dan memancarkan cahaya biru ($\lambda_{\max} = 450\text{–}490\,\text{nm}$) yang sesuai dengan jendela transmisi optik air laut. Krustasea Vargula hilgendorfii menyemburkan awan biru bercahaya ($462\,\text{nm}$) menggunakan vargulin.
- Dinoflagellata (Noctiluca) dan Kanal Proton Berpintu Tegangan ($\text{H}_v1$): Tegangan geser mekanis dari ombak mendepolarisasi membran vakuola dan membuka kanal $\text{H}_v1$, menurunkan pH di dalam scintillon dari $8,0$ ke $6,0$ dalam milidetik dan memicu kilatan biru $100\,\text{ms}$ ($475\,\text{nm}$) sebagai “alarm pencuri” (Burglar Alarm).
- Operon Bakteri
luxCDABEGdan Quorum Sensing: Bakteri simbion Aliivibrio fischeri (di dalam cumi-cumi Euprymna scolopes) mengoksidasi $\text{FMNH}_2$ dan aldehida rantai panjang ($\text{RCHO}$) pada $490\,\text{nm}$ hanya ketika autoinduser AHL melampaui ambang kepadatan sel tinggi ($>10^{10}\,\text{sel/mL}$). - Siklus Asam Kafeat Jamur (Mycena, Neonothopanus): Empat enzim (
HispS,H3H,Luz,CPH) mengubah asam kafeat menjadi 3-hidroksihispidin yang memancarkan cahaya hijau ($520\text{–}530\,\text{nm}$) lalu didaur ulang kembali menjadi asam kafeat (Kotlobay et al., 2018, PNAS). - Kamuflase Counterillumination dan Lampu Sorot Merah (Malacosteus niger): Ikan lentera menghapus bayangan ventralnya dengan cahaya biru ($475\,\text{nm}$), sedangkan ikan naga laut dalam Malacosteus niger memancarkan cahaya merah-jauh/inframerah-dekat ($>700\,\text{nm}$) bersama fotosensitizer turunan klorofil di retinanya untuk berburu mangsa merah secara tak kasatmata.
Bab 5: Pencitraan Medis (AkaBLI), Higienitas ATP, dan Tanaman Bercahaya Mandiri
- Pencitraan Bioluminesensi In Vivo (BLI) dan Sistem Inframerah-Dekat AkaBLI: Bebas dari derau autofluoresensi jaringan, BLI mencapai terobosan saat Iwano & Miyawaki et al. (2018, Science, RIKEN) merancang pasangan AkaLumine-HCl / AkaLuc ($\lambda_{\max} = 677\,\text{nm}$ di jendela biologis inframerah), meningkatkan sensitivitas jaringan dalam hingga 1.000 kali lipat dan memvisualisasikan satu sel kanker metastatik tunggal di paru-paru tikus hidup.
- NanoLuc dan Luminometer Higienitas ATP: Lusiferase NanoLuc ($19\,\text{kDa}$) dari udang laut dalam Oplophorus bersinar $150\times$ lebih terang daripada kunang-kunang; luminometer ATP mendeteksi $10^{-15}\text{–}10^{-18}\,\text{mol}$ ATP mikroba dalam 10 detik untuk sterilisasi medis, pangan, dan wahana antariksa.
- Tanaman Bercahaya Mandiri (Firefly Petunia): Dengan menyisipkan empat gen siklus asam kafeat jamur (prekursor lignin universal pada tumbuhan berpembuluh) ke dalam tembakau dan petunia (Mitiouchkina et al., 2020, Nature Biotechnology), terciptalah tanaman yang memancarkan cahaya hijau mandiri yang tampak oleh mata telanjang sepanjang hidupnya tanpa tambahan bahan kimia eksternal.