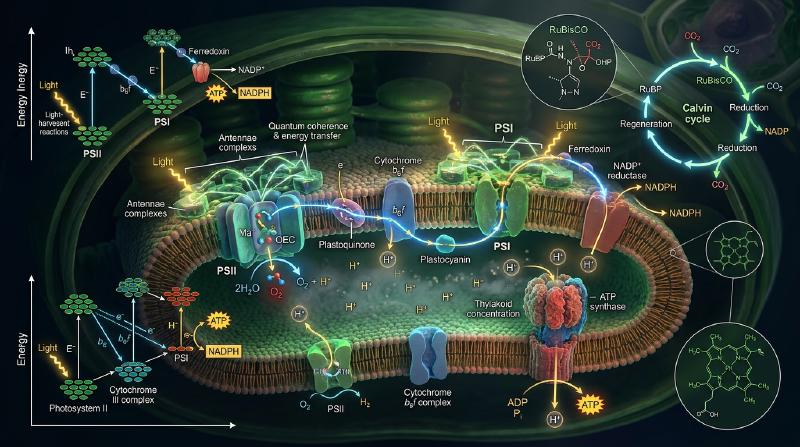
Introduction : Le moteur thermodynamique de la biosphère
Toute la chaîne trophique terrestre repose sur un prodige biochimique : la photosynthèse.
Chaque année, les végétaux, algues et cyanobactéries convertissent le flux solaire pour fixer plus de 100 milliards de tonnes de dioxyde de carbone ($\text{CO}_2$) en biomasse, libérant une quantité équivalente d’oxygène pur ($\text{O}_2$). La puissance biologique globale atteint 100 térawatts ($100\text{ TW}$).
  flowchart LR
    subgraph PhotosynthesisMacro["Les deux grandes étapes photosynthétiques"]
        direction LR
        subgraph LightReaction["Réactions lumineuses (Membrane thylakoïde)"]
            Sun["Photons solaires (hν)"] --> PSII["Photosystème II (Photolyse de l'eau)"]
            H2O["Eau (2H2O)"] --> PSII
            PSII -->|Dégagement d'O2| O2["Oxygène (O2)"]
            PSII -->|Chaîne de transfert d'électrons| Cyt["Cytochrome b6f & PSI"]
            Cyt -->|Force proto-motrice| ATP_Syn["ATP synthase"]
            ATP_Syn --> ATP["Énergie chimique: ATP"]
            Cyt --> NADPH["Pouvoir réducteur: NADPH"]
        end

        subgraph DarkReaction["Cycle de Calvin (Stroma)"]
            CO2["CO2 atmosphérique"] --> RuBisCO["Fixation du carbone"]
            ATP -.->|Énergie| RuBisCO
            NADPH -.->|Pouvoir réducteur| RuBisCO
            RuBisCO --> Sugar["Glucides (G3P / Glucose)"]
        end
    end
Tandis que nos cellules photovoltaïques peinent à dépasser 20% d’efficacité électrique, le transfert d’énergie d’excitation au sein des antennes collectrices atteint un rendement quantique proche de 100%.
1. Architecture supramoléculaire des thylakoïdes
L’efficacité du système repose sur la ségrégation spatiale latérale des complexes protéiques :
- Photosystème II (PSII) : Confiné dans les zones accolées denses (grana) ;
- Photosystème I (PSI) : Exclusif aux membranes non accolées (lamelles du stroma) pour éviter le siphonage d’énergie de PSII ;
- Cytochrome $b_6f$ : Distribué uniformément pour le transit redox ;
- $F_oF_1$-ATP synthase : Strictement cantonné au stroma en raison de l’encombrement stérique de sa tête catalytique $F_1$.
2. Biologie quantique : Cohérence et transfert d’exciton
  flowchart TD
    subgraph ExcitonTransfer["Mécanismes de migration d'excitons"]
        Photon["Absorption d'un photon"] --> LHC["Antennes collectrices (LHCII)"]
        LHC --> Exciton["Exciton délocalisé de Frenkel"]
        Exciton --> FRET["FRET classique (Saut dipolaire aléatoire: R⁻⁶)"]
        Exciton --> Coherence["Cohérence quantique (Superposition d'ondes)"]
        Coherence --> RC["Piégeage ultrarapide au centre réactionnel"]
    end
La spectroscopie électronique 2D a prouvé que les excitons se déplacent sous forme d’ondes de superposition quantique cohérentes. L’exciton explore simultanément de multiples chemins à travers le réseau de chlorophylles, guidé par les phonons thermiques des protéines (ENAQT) pour atteindre le piège en moins de $50\text{ ps}$.
3. Réactions claires : Schéma en Z et photolyse de l’eau
  flowchart TD
    subgraph ZScheme["Échelle redox du schéma en Z"]
        direction TB
        P680["P680 état fondamental (+1,25 V oxydant le plus puissant)"]
        P680_star["P680* excité (-0,8 V)"]
        Pheo["Phéophytine (-0,6 V)"]
        PQ["Pool de plastoquinones"]
        Cytb6f["Cytochrome b6f (Cycle Q)"]
        PC["Plastocyanine (+0,37 V)"]
        P700["P700 état fondamental (+0,45 V)"]
        P700_star["P700* excité (-1,2 V)"]
        Fd["Ferredoxine (-0,43 V)"]
        NADPH["Synthèse de NADPH (-0,32 V)"]

        P680 -->|hν 680nm| P680_star --> Pheo --> PQ --> Cytb6f --> PC --> P700
        P700 -->|hν 700nm| P700_star --> Fd --> NADPH
    end
- Cation radicalaire $\text{P680}^{+\bullet}$ : Son potentiel de $+1,25\text{ V}$ en fait la seule molécule vivante capable d’arracher les électrons de l’eau.
- Horloge de Kok et cluster $\text{Mn}_4\text{CaO}_5$ : Le complexe d’oxydation de l’eau accumule 4 équivalents d’oxydation ($S_0 \rightarrow S_4$) avant de catalyser l’oxydation de 2 molécules d’eau, produisant 1 molécule d’$\text{O}_2$ et 4 protons :
4. Force proton-motrice et nanocarrousel ATP synthase
L’accumulation de protons génère un différentiel de $\text{pH}$ ($\Delta\text{pH} \approx 2,5 \sim 3,0$), établissant une force proto-motrice :
$$\Delta p = \Delta\Psi - \frac{2,303 R T}{F} \Delta\text{pH} \approx 200\text{ mV}$$Le passage des protons à travers le rotor $c$ de $F_o$ entraîne la rotation de l’axe central $\gamma$. Dans la tête $\alpha_3\beta_3$, les sites catalytiques alternent entre trois états (Ouvert, Lâche, Serré), synthétisant 3 ATP par tour complet avec un rendement énergétique de 90%.
5. Cycle de Calvin et l’impasse de la RuBisCO
  flowchart TD
    subgraph CalvinCycle["Les 3 phases du cycle de Calvin"]
        S1["Phase 1 : Carboxylation (RuBisCO: CO2 + RuBP -> 2 × 3-PGA)"]
        S2["Phase 2 : Réduction (6 ATP + 6 NADPH -> 6 G3P)"]
        S3["Phase 3 : Régénération (5 G3P + 3 ATP -> 3 RuBP)"]

        S1 --> S2 --> S3 --> S1
        S2 --> Out["Production nette : 1 G3P (Glucose et amidon)"]
    end
Apparue à une époque anoxique, la RuBisCO confond régulièrement $\text{CO}_2$ et $\text{O}_2$. La réaction d’oxygénation génère un composé toxique éliminé par la photorespiration, gaspillant de 25% à 40% de l’énergie photosynthétique !
- Plantes C4 (Maïs) : Séparation spatiale. Le $\text{CO}_2$ est piégé dans le mésophylle et reconcentré dans la gaine périvasculaire.
- Plantes CAM (Cactus) : Séparation temporelle. Les stomates ne s’ouvrent que la nuit pour capter le $\text{CO}_2$ sous forme de malate.
Conclusion
Dans chaque chloroplaste, la mécanique quantique, l’oxydoréduction et la nanorotation mécanique s’harmonisent pour soutenir l’édifice de la vie sur Terre.