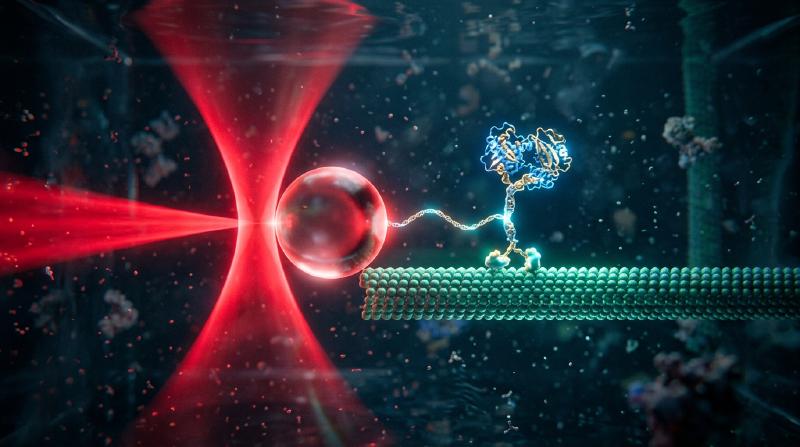
1. Introduction : Pourquoi la lumière sans masse peut-elle pousser et tirer la matière ?
Dans notre expérience macroscopique quotidienne, la lumière semble totalement immatérielle. Pourtant, selon la physique fondamentale, le rayonnement électromagnétique transporte à la fois de l’énergie et une impulsion (quantité de mouvement) linéaire. Dès 1619, Johannes Kepler observa que les queues de poussière des comètes pointent toujours à l’opposé du Soleil, suggérant une pression de radiation. En 1873, James Clerk Maxwell démontra que les ondes électromagnétiques transportent une impulsion via le vecteur de Poynting $\mathbf{S} = \frac{1}{\mu_0}(\mathbf{E} \times \mathbf{B})$. En 1905, la relativité restreinte d’Albert Einstein ($E^2 = (pc)^2 + (mc^2)^2$) établit pour un photon de masse au repos nulle ($m = 0$) et d’énergie $E = h\nu = hc/\lambda$ l’impulsion :
$$ p = \frac{E}{c} = \frac{h\nu}{c} = \frac{h}{\lambda} $$Lorsqu’un faisceau laser de puissance $P$ frappe normalement une surface totalement absorbante ou un miroir parfait, la force exercée vaut :
$$ F_{\text{abs}} = \frac{P}{c}, \qquad F_{\text{ref}} = \frac{2P}{c} $$En raison de l’immense vitesse de la lumière $c \approx 3.0 \times 10^8\,\text{m/s}$, un laser de $1\,\text{W}$ ne produit qu’une force de $3.3\,\text{nN}$. Mais dès que l’on descend à l’échelle micrométrique ($10^{-6}\,\text{m}$) des cellules vivantes et des microbilles colloïdales, ou à l’échelle nanométrique ($10^{-9}\,\text{m}$) des macromolécules biologiques, la hiérarchie des forces s’inverse : une microbille de polystyrène de rayon $a = 1\,\mu\text{m}$ ne pèse que $m \approx 4.4 \times 10^{-15}\,\text{kg}$, soit un poids gravitationnel minuscule de $mg \approx 0.043\,\text{pN}$ ($1\,\text{pN} = 10^{-12}\,\text{N}$). Quelques dizaines de milliwatts de lumière laser focalisée génèrent des forces de plusieurs piconewtons ($\text{pN}$), dépassant la gravité de plusieurs ordres de grandeur ! Mieux encore, au voisinage du foyer d’un faisceau fortement focalisé, une particule diélectrique transparente subit une force de gradient optique conservative qui l’attire vers le point de plus haute intensité lumineuse : c’est le principe des pinces optiques (Optical Tweezers).
2. Les percées pionnières d’Arthur Ashkin et la naissance des pinces optiques
En 1970, aux Bell Laboratories, Arthur Ashkin (1922–2020) dirigea un faisceau laser argon-ion ($\lambda = 514.5\,\text{nm}$) sur des microbilles de latex transparentes en suspension dans l’eau (Physical Review Letters, 24, 156). Au lieu d’être simplement poussées vers l’avant, les billes situées sur le bord du faisceau étaient simultanément aspirées transversalement vers l’axe central brillant du faisceau gaussien ! La même année, il réalisa le premier piège optique 3D à deux faisceaux contre-propageants.
En 1986, Ashkin, J. M. Dziedzic, J. E. Bjorkholm et Steven Chu publièrent leur article fondateur (Optics Letters, 11, 288, 1986) démontrant qu’un unique faisceau laser fortement focalisé par un objectif de grande ouverture numérique ($\text{NA} = 1.25$) produit un gradient axial suffisant pour vaincre la force de diffusion vers l’avant et piéger en 3D des particules de $10\,\mu\text{m}$ jusqu’à $25\,\text{nm}$ : les pinces optiques étaient nées. Dès 1987, passant à un laser Nd:YAG proche infrarouge ($\lambda = 1064\,\text{nm}$) pour éviter tout dommage photochimique, Ashkin piégea des bactéries E. coli vivantes et des levures en division, recevant le prix Nobel de physique 2018.
3. Mécanique du piégeage en régime d’optique géométrique (Diffusion de Mie, $a \gg \lambda$)
Lorsque le rayon de la sphère est grand devant la longueur d’onde ($a \gg \lambda$), la réfraction d’un rayon de puissance $P_{\text{ray}}$ par une sphère d’indice $n_p > n_m$ ($m = n_p/n_m > 1$) impose, par conservation de l’impulsion, une force de recul mécanique $\mathbf{F}_{\text{ray}}$ :
$$ \mathbf{F}_{\text{ray}} = -\frac{d\mathbf{p}_{\text{light}}}{dt} = -\frac{n_m P_{\text{ray}}}{c} \left( \hat{\mathbf{u}}_{\text{out}} - \hat{\mathbf{u}}_{\text{in}} \right) $$
  flowchart TD
    subgraph Lateral["1. Force de rappel transversale (latérale) dans un faisceau gaussien"]
        L1["La sphère est décalée latéralement vers la droite (+x) de l'axe"] --> L2["Le rayon A (gauche) passe près du centre brillant (forte puissance P_A) et réfracte vers la droite"]
        L1 --> L3["Le rayon B (droite) passe dans l'aile sombre (faible puissance P_B) et réfracte vers la gauche"]
        L2 --> L4["La force de recul F_A (tirant vers la gauche, -x) l'emporte largement sur F_B (+x)"]
        L3 --> L4
        L4 --> L5["La force de gradient transversale nette F_x ramène la sphère sur l'axe (x = 0)"]
    end

    subgraph Axial["2. Force de rappel axiale sous forte focalisation ( Haute NA )"]
        A1["La sphère est décalée en aval (+z) au-delà du foyer O"] --> A2["Les rayons marginaux très divergents sont rabattus vers l'axe z par la sphère"]
        A2 --> A3["Les rayons sortants sont plus collimatés, l'impulsion axiale p_z de la lumière augmente (Δp_z > 0)"]
        A3 --> A4["Par conservation de l'impulsion, la sphère subit un recul vers l'amont (-z, vers le foyer O)"]
        A4 --> A5["La force de gradient arrière surmonte la force de diffusion avant et verrouille le piège 3D"]
    end
- Stabilité latérale : Dans un profil gaussien $I(r) = I_0 \exp(-2r^2/w_0^2)$, les rayons proches du cœur du faisceau sont plus intenses et exercent un recul de réfraction qui ramène systématiquement la bille sur l’axe optique.
- Stabilité axiale et nécessité d’un objectif de haute ouverture numérique (High-NA) : En aval du foyer ($+z$), la bille redresse les rayons marginaux fortement divergents, augmentant l’impulsion avant $p_z$ de la lumière ($\Delta p_z > 0$) et créant par réaction une force de rappel vers le foyer ($-z$). Seuls les rayons à grand angle issus d’un objectif à immersion de haute ouverture numérique ($\text{NA} = n_m \sin\theta_{\max} \ge 1.2$) permettent à ce recul de vaincre la poussée des réflexions de Fresnel.
4. Régime dipolaire électromagnétique (Diffusion de Rayleigh, $a \ll \lambda$)
Pour une nanoparticule ($a \ll \lambda$), la bille agit comme un dipôle électrique induit $\mathbf{p} = \alpha \mathbf{E}$ dont la polarisabilité de Clausius-Mossotti $\alpha$ est proportionnelle au volume ($\propto a^3$) :
$$ \alpha = 4\pi n_m^2 \varepsilon_0 a^3 \left( \frac{m^2 - 1}{m^2 + 2} \right) \qquad \left(m \equiv \frac{n_p}{n_m}\right) $$La moyenne temporelle de la force de Lorentz et la section efficace de diffusion de Rayleigh ($\sigma_{\text{scat}} \propto k^4 a^6$) donnent la force de gradient $\mathbf{F}_{\text{grad}}$ et la force de diffusion $\mathbf{F}_{\text{scat}}$ :
$$ \mathbf{F}_{\text{grad}}(\mathbf{r}) = \frac{2\pi n_m a^3}{c} \left( \frac{m^2 - 1}{m^2 + 2} \right) \nabla I(\mathbf{r}) = -\nabla U(\mathbf{r}) $$$$ \mathbf{F}_{\text{scat}}(\mathbf{r}) = \frac{n_m \sigma_{\text{scat}}}{c} I(\mathbf{r})\hat{\mathbf{z}} = \frac{128 \pi^5 n_m^5 a^6}{3 c \lambda_0^4} \left( \frac{m^2 - 1}{m^2 + 2} \right)^2 I(\mathbf{r}) \hat{\mathbf{z}} $$| Propriété physique | Force de gradient ($\mathbf{F}_{\text{grad}}$) | Force de diffusion ($\mathbf{F}_{\text{scat}}$) |
|---|---|---|
| Origine physique | Champ inhomogène sur dipôle induit (minimisation d’énergie potentielle $U$) | Transfert d’impulsion par absorption et réémission de Rayleigh |
| Direction d’action | Le long du gradient d’intensité $\nabla I(\mathbf{r})$ (vers le foyer 3D si $n_p > n_m$) | Le long du vecteur d’onde $\hat{\mathbf{z}}$ (pousse la particule vers l’aval) |
| Loi d’échelle en rayon $a$ ($a \ll \lambda$) | Proportionnelle au volume ($\propto a^3$) | Proportionnelle au carré du volume ($\propto a^6$) |
| Loi d’échelle en longueur d’onde $\lambda_0$ | Via la géométrie de la tache focale | Puissance quatrième inverse ($\propto \lambda_0^{-4}$) |
| Contraste d’indice $m = n_p/n_m$ | Linéaire en $\left(\frac{m^2-1}{m^2+2}\right)$ (change de signe à $m=1$) | Quadratique $\left(\frac{m^2-1}{m^2+2}\right)^2$ (toujours répulsive vers l’avant) |
Pour confiner une particule face à l’agitation thermique $k_B T \approx 4.14\,\text{pN}\cdot\text{nm}$ ($T = 300\,\text{K}$), la profondeur du puits de potentiel doit vérifier $|U_{\min}| \propto a^3 I_{\max} \gtrsim 10\,k_B T$. En raison de la loi en $a^3$, les biophysiciens greffent les protéines ou l’ADN sur une microbille diélectrique ($2a \sim 0.5\text{–}2\,\mu\text{m}$) servant de poignée mécanique.
5. Mouvement brownien, équation de Langevin et étalonnage au piconewton
Près du centre du piège ($|\Delta x| \lesssim 150\,\text{nm}$), le potentiel est harmonique ($U(x) \approx \frac{1}{2}\kappa_x x^2$) et obéit à la loi de Hooke :
$$ F_{\text{trap}}(x) = -\kappa_x \Delta x $$où $\kappa_x$ ($0.005\text{–}1.0\,\text{pN/nm}$) est la raideur du piège (Trap Stiffness). À très bas nombre de Reynolds ($\text{Re} \sim 10^{-5} \ll 1$), l’inertie est négligeable et la trajectoire $x(t)$ suit l’équation de Langevin sur-amortie avec la traînée de Stokes $\gamma = 6\pi\eta_{\text{vis}}a$ :
$$ \gamma \frac{dx(t)}{dt} + \kappa x(t) = \sqrt{2\gamma k_B T}\,\eta(t) $$
  flowchart TD
    subgraph Detection["Interférométrie dans le plan focal arrière (BFP)"]
        I1["Laser proche-IR (λ = 1064 nm) focalisé par objectif haute NA"] --> I2["Piégeage 3D de la microbille (2a = 0.5–2 μm) en chambre aqueuse"]
        I2 --> I3["L'onde diffusée vers l'avant interfère avec le faisceau transmis"]
        I3 --> I4["Le condenseur projette l'interférence sur une photodiode à quatre quadrants (QPD)"]
        I4 --> I5["Signaux différentiels livrant la position x(t) avec résolution sub-nanométrique à 100 kHz"]
    end

    subgraph Calibration["Trois méthodes d'étalonnage de la raideur du piège (κ)"]
        I5 --> M1["1. Équipartition : Mesure de la variance ⟨x²⟩ et calcul κ = k_B T / ⟨x²⟩"]
        I5 --> M2["2. Densité spectrale de puissance (PSD) : Ajustement lorentzien S_xx(f) et fréquence de coupure f_c = κ / (2πγ)"]
        I5 --> M3["3. Traînée hydrodynamique de Stokes : Vitesse de platine piézo v et décalage Δx = γ(h)v / κ"]
    end
- Théorème d’équipartition : $\frac{1}{2}\kappa \langle x^2 \rangle = \frac{1}{2}k_B T \implies \kappa = k_B T / \langle x^2 \rangle$.
- Densité spectrale de puissance (PSD) : Le spectre de puissance suit un profil lorentzien caractérisé par la fréquence de coin $f_c$ : $$ S_{xx}(f) = \frac{k_B T}{\pi^2 \gamma \left( f_c^2 + f^2 \right)}, \qquad f_c = \frac{\kappa}{2\pi \gamma} $$
- Traînée hydrodynamique de Stokes (avec correction de paroi de Faxén) : $F = \gamma_\parallel(h)v = \kappa \Delta x$.
6. Révolution de la biophysique à molécule unique : Élasticité de l’ADN et moteurs moléculaires
L’utilisation de la fenêtre optique biologique proche-IR ($\lambda = 1064\,\text{nm}$) associée à des systèmes enzymatiques piégeurs d’oxygène élimine la phototoxicité.
Carlos Bustamante et l’élasticité entropique d’une molécule d’ADN unique
Entre 1992 et 1996, Carlos Bustamante et ses collègues ont mesuré la courbe force-extension $F(z)$ d’une molécule unique d’ADN double brin du phage $\lambda$ ($L_0 \approx 16.5\,\mu\text{m}$), validant le modèle de la chaîne semi-flexible (Worm-Like Chain, WLC) (Marko & Siggia, 1995) avec une longueur de persistance $L_p \approx 50\,\text{nm}$ :
$$ F(z) = \frac{k_B T}{L_p} \left[ \frac{1}{4\left(1 - z/L_0\right)^2} - \frac{1}{4} + \frac{z}{L_0} \right] $$et révélant à $F \approx 65\,\text{pN}$ la transition de sur-étirement (Overstretching Transition) où l’ADN s’allonge d’un facteur $1.7$.
Steven Block : Les pas de 8 nm de la kinésine et la résolution d’une paire de bases de l’ARN polymérase
- Kinésine-1 : En 1993, l’équipe de Steven Block (Nature, 365, 721) a démontré qu’une molécule unique de kinésine avance le long d’un microtubule par pas discrets de $\Delta d = 8.2\,\text{nm}$, consommant exactement 1 molécule d’ATP par pas jusqu’à une force de décrochage (Stall Force) de $F_{\text{stall}} \approx 6\text{–}7\,\text{pN}$ (rendement thermodynamique de $\sim 50\text{–}60\%$).
- Double piège optique et ARN polymérase (RNAP) : En 2005, grâce à un double piège optique passif isolé dans l’hélium, le groupe de Block a résolu les pas élémentaires de $3.4\,\text{\AA}$ ($0.34\,\text{nm}$, une seule paire de bases) de l’ARN polymérase transcrivant l’ADN !
7. Frontières modernes : Pinces holographiques, plasmonique et optomécanique quantique
- Pinces optiques holographiques (HOT) & clés optiques : Des modulateurs spatiaux de lumière (SLM) contrôlent des centaines de pièges en 3D, tandis que le moment cinétique de spin ($\pm\hbar$) ou orbital ($\ell\hbar$ des faisceaux vortex de Laguerre-Gauss) fait tourner des micro-engrenages.
- Nanopinces plasmoniques : Les résonances plasmoniques de surface localisées (LSPR) de nano-antennes métalliques piègent directement des protéines uniques ($< 10\,\text{nm}$).
- Réseaux d’atomes neutres & optomécanique quantique sous vide : Les réseaux de pinces optiques permettent l’informatique quantique à atomes neutres et le refroidissement de nanosphères de silice lévitées sous ultravide jusqu’à leur état fondamental quantique de mouvement ($\bar{n} < 1$ phonon) (Delić et al., Science, 2020).