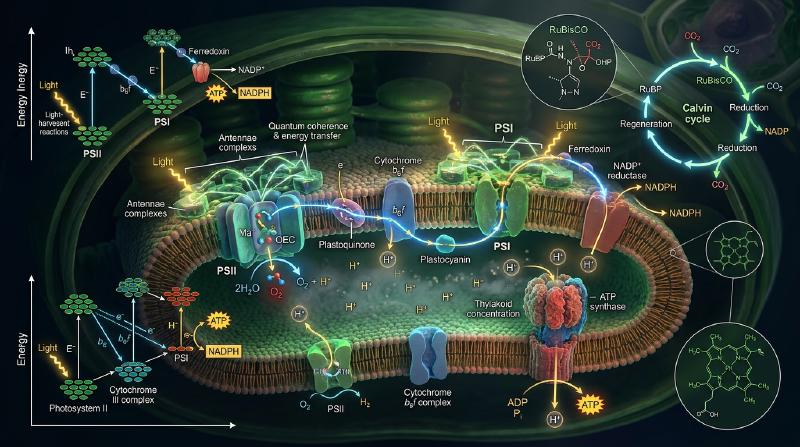
Introducción: El motor termodinámico de la biosfera
La biosfera terrestre se sustenta sobre un único proceso molecular maestro: la fotosíntesis.
Cada año, las plantas, algas y cianobacterias capturan la radiación solar para fijar más de 100.000 millones de toneladas de dióxido de carbono ($\text{CO}_2$) en biomasa, liberando una masa equivalente de oxígeno molecular ($\text{O}_2$). Su potencia metabólica total ronda los 100 teravatios ($100\text{ TW}$).
  flowchart LR
    subgraph PhotosynthesisMacro["Las dos fases de la fotosíntesis"]
        direction LR
        subgraph LightReaction["Fase luminosa (Membrana tilacoidal)"]
            Sun["Fotones solares (hν)"] --> PSII["Fotosistema II (Fotólisis del agua)"]
            H2O["Agua (2H2O)"] --> PSII
            PSII -->|Liberación de O2| O2["Oxígeno (O2)"]
            PSII -->|Cadena de transporte electrónico| Cyt["Citocromo b6f y PSI"]
            Cyt -->|Fuerza protón-motriz| ATP_Syn["ATP sintasa"]
            ATP_Syn --> ATP["Energía química: ATP"]
            Cyt --> NADPH["Poder reductor: NADPH"]
        end

        subgraph DarkReaction["Ciclo de Calvin (Estroma)"]
            CO2["CO2 atmosférico"] --> RuBisCO["Fijación del carbono"]
            ATP -.->|Fosfatos y energía| RuBisCO
            NADPH -.->|Electrones| RuBisCO
            RuBisCO --> Sugar["Carbohidratos (G3P / Glucosa)"]
        end
    end
Mientras los paneles solares artificiales rondan el 20% de rendimiento, el transporte de energía de excitación en las antenas de clorofila alcanza un rendimiento cuántico cercano al 100%.
1. Arquitectura supramolecular del cloroplasto
La extrema eficiencia fotosintética depende de la segregación espacial de los complejos en la membrana tilacoidal:
- Fotosistema II (PSII): Restringido a las membranas apiladas densas (grana).
- Fotosistema I (PSI): Ubicado en las laminillas del estroma no apiladas, evitando pérdidas de energía por proximidad (spillover).
- Citocromo $b_6f$: Distribuido uniformemente actuando como puente redox móvil.
- $F_oF_1$-ATP sintasa: Confinada a las zonas expuestas al estroma, dado que su cabeza catalítica globular $F_1$ no cabe en las estrechas particiones de los grana.
2. Biología cuántica: Coherencia y transferencia de excitones
  flowchart TD
    subgraph ExcitonTransfer["Dinámica del excitón"]
        Photon["Absorción de fotón"] --> LHC["Antena recolectora (LHCII)"]
        LHC --> Exciton["Excitón de Frenkel deslocalizado"]
        Exciton --> FRET["FRET clásico (Saltos dipolares: R⁻⁶)"]
        Exciton --> Coherence["Coherencia cuántica (Búsqueda por superposición)"]
        Coherence --> RC["Atrapamiento ultrarrápido en el centro de reacción"]
    end
La espectroscopía bidimensional ha revelado que la excitación viaja como un paquete de ondas cuántico coherente, sondeando simultáneamente múltiples rutas de transferencia. Asistido por vibraciones de la matriz proteica (ENAQT), el excitón llega al centro de reacción en menos de $50\text{ ps}$ con mínimas pérdidas disipativas.
3. Reacciones luminosas: Esquema en Z y fotólisis del agua
  flowchart TD
    subgraph ZScheme["Escalera redox del esquema en Z"]
        direction TB
        P680["P680 estado basal (+1,25 V oxidante biológico máximo)"]
        P680_star["P680* excitado (-0,8 V)"]
        Pheo["Feofitina (-0,6 V)"]
        PQ["Plastoquinona (PQH2)"]
        Cytb6f["Citocromo b6f (Ciclo Q)"]
        PC["Plastocianina (+0,37 V)"]
        P700["P700 estado basal (+0,45 V)"]
        P700_star["P700* excitado (-1,2 V)"]
        Fd["Ferredoxina (-0,43 V)"]
        NADPH["Producción de NADPH (-0,32 V)"]

        P680 -->|hν 680nm| P680_star --> Pheo --> PQ --> Cytb6f --> PC --> P700
        P700 -->|hν 700nm| P700_star --> Fd --> NADPH
    end
- P680: Con un potencial redox de $+1,25\text{ V}$, es la única especie bioquímica capaz de arrancar electrones del agua.
- Complejo de evolución de oxígeno (OEC): Alberga el clúster $\text{Mn}_4\text{CaO}_5$. Mediante el reloj de estados S de Kok ($S_0 \rightarrow S_4$), almacena cuatro equivalentes de oxidación antes de escindir dos moléculas de agua en una molécula de $\text{O}_2$ y 4 protones:
4. Fuerza protón-motriz y nanomotor ATP sintasa
El gradiente transmembranal genera una fuerza protón-motriz ($\Delta p \approx 200\text{ mV}$), sostenida por un $\Delta\text{pH} \approx 2,5 \sim 3,0$.
Al regresar los protones hacia el estroma a través de la $F_oF_1$-ATP sintasa:
- El anillo $c$ de $F_o$ rota mecánicamente;
- El eje central $\gamma$ rota de forma excéntrica induciendo cambios conformacionales cíclicos (Abierto, Laxo, Apretado) en los dominios catalíticos $\alpha_3\beta_3$, generando 3 moléculas de ATP por revolución con un rendimiento mecánico del 90%.
5. El ciclo de Calvin y la paradoja de la RuBisCO
  flowchart TD
    subgraph CalvinCycle["Fases del ciclo de Calvin"]
        S1["Fase 1: Fijación del carbono (RuBisCO: CO2 + RuBP -> 2 × 3-PGA)"]
        S2["Fase 2: Reducción (Gasto de 6 ATP + 6 NADPH -> 6 G3P)"]
        S3["Fase 3: Regeneración de RuBP (5 G3P + 3 ATP -> 3 RuBP)"]

        S1 --> S2 --> S3 --> S1
        S2 --> Out["Rendimiento neto: 1 G3P (Glucosa y almidón)"]
    end
La RuBisCO, originada en una atmósfera primordial carente de oxígeno, confunde con frecuencia el $\text{CO}_2$ con el $\text{O}_2$. La fotorrespiración resultante disipa hasta un 40% de la energía fijada.
- Plantas C4 (Maíz, caña de azúcar): Separación espacial. Concentran activamente el $\text{CO}_2$ alrededor de la RuBisCO en las células de la vaina vascular.
- Plantas CAM (Cactus, piña): Separación temporal. Abren sus estomas de noche para acumular malato y mantienen los estomas cerrados de día para ahorrar agua.
Conclusión
En cada hoja verde, la mecánica cuántica, la química inorgánica de transición y los motores rotatorios macromoleculares confluyen para tejer la trama energética de nuestro planeta.