1. Introducción: ¿Por qué la luz sin masa puede empujar y atraer la materia?
En nuestra experiencia macroscópica cotidiana, la luz parece completamente intangible. Sin embargo, desde el punto de vista de la física fundamental, la radiación electromagnética transporta tanto energía como momento lineal (cantidad de movimiento). Ya en 1619, Johannes Kepler observó que las colas de polvo de los cometas apuntan siempre en dirección opuesta al Sol, postulando la existencia de una presión de radiación. En 1873, James Clerk Maxwell demostró que las ondas electromagnéticas transportan momento mediante el vector de Poynting $\mathbf{S} = \frac{1}{\mu_0}(\mathbf{E} \times \mathbf{B})$. En 1905, la relatividad especial de Albert Einstein ($E^2 = (pc)^2 + (mc^2)^2$) estableció para un fotón sin masa en reposo ($m = 0$) y energía $E = h\nu = hc/\lambda$ el momento lineal:
$$ p = \frac{E}{c} = \frac{h\nu}{c} = \frac{h}{\lambda} $$Cuando un haz láser colimado de potencia $P$ incide perpendicularmente sobre una superficie totalmente absorbente o un espejo perfecto, la fuerza de radiación es:
$$ F_{\text{abs}} = \frac{P}{c}, \qquad F_{\text{ref}} = \frac{2P}{c} $$Debido a la enorme velocidad de la luz $c \approx 3.0 \times 10^8\,\text{m/s}$, un láser de $1\,\text{W}$ ejerce apenas $3.3\,\text{nN}$. Pero al descender a la escala micrométrica ($10^{-6}\,\text{m}$) de las microesferas coloidales y células vivas, o a la escala nanométrica ($10^{-9}\,\text{m}$) de las macromoléculas biológicas, la jerarquía de fuerzas se invierte por completo: una microesfera de poliestireno de radio $a = 1\,\mu\text{m}$ tiene una masa de solo $m \approx 4.4 \times 10^{-15}\,\text{kg}$ y un peso gravitatorio de $mg \approx 0.043\,\text{pN}$ ($1\,\text{pN} = 10^{-12}\,\text{N}$). Decenas de milivatios de luz láser enfocada generan fuerzas de varios piconewtons ($\text{pN}$), superando la gravedad por órdenes de magnitud. Más aún, cerca del foco de un haz láser fuertemente enfocado, una partícula dieléctrica transparente experimenta una fuerza de gradiente óptico conservativa que la atrae hacia el punto de máxima intensidad luminosa: esta es la tecnología de las pinzas ópticas (Optical Tweezers).
2. Los avances pioneros de Arthur Ashkin y el nacimiento de las pinzas ópticas
En 1970, en los Bell Laboratories, Arthur Ashkin (1922–2020) enfocó un láser de iones de argón ($\lambda = 514.5\,\text{nm}$) sobre microesferas de látex transparentes suspendidas en agua (Physical Review Letters, 24, 156). En lugar de ser simplemente empujadas hacia adelante, las esferas cercanas al borde del haz eran simultáneamente atraídas transversalmente hacia el brillante eje central del haz gaussiano. Ese mismo año construyó la primera trampa óptica 3D mediante dos haces contrapropagantes.
En 1986, Ashkin, J. M. Dziedzic, J. E. Bjorkholm y Steven Chu publicaron su artículo seminal (Optics Letters, 11, 288, 1986), demostrando que un único haz láser fuertemente enfocado a través de un objetivo de alta apertura numérica ($\text{NA} = 1.25$) genera una fuerza de gradiente axial hacia atrás capaz de superar la fuerza de dispersión hacia adelante, atrapando establemente en 3D partículas dieléctricas desde $10\,\mu\text{m}$ hasta $25\,\text{nm}$: habían nacido las pinzas ópticas. En 1987, utilizando un láser Nd:YAG en el infrarrojo cercano ($\lambda = 1064\,\text{nm}$) para evitar el fotodaño, Ashkin atrapó bacterias E. coli vivas, levaduras en división y virus, recibiendo por ello el Premio Nobel de Física 2018.
3. Mecánica del atrapamiento en el régimen de óptica geométrica (Dispersión de Mie, $a \gg \lambda$)
Cuando el radio de la esfera es mucho mayor que la longitud de onda ($a \gg \lambda$), la refracción de un rayo de potencia $P_{\text{ray}}$ a través de una esfera de índice $n_p > n_m$ ($m = n_p/n_m > 1$) imparte, por conservación del momento lineal, una fuerza de retroceso mecánico $\mathbf{F}_{\text{ray}}$:
$$ \mathbf{F}_{\text{ray}} = -\frac{d\mathbf{p}_{\text{light}}}{dt} = -\frac{n_m P_{\text{ray}}}{c} \left( \hat{\mathbf{u}}_{\text{out}} - \hat{\mathbf{u}}_{\text{in}} \right) $$
  flowchart TD
    subgraph Lateral["1. Fuerza restauradora transversal (lateral) en un haz gaussiano"]
        L1["La esfera se desplaza lateralmente a la derecha (+x) del eje del haz"] --> L2["El rayo A (izquierda) pasa cerca del centro brillante (alta potencia P_A) y se refracta a la derecha"]
        L1 --> L3["El rayo B (derecha) pasa por el borde tenue (baja potencia P_B) y se refracta a la izquierda"]
        L2 --> L4["La fuerza de reacción F_A (hacia la izquierda, -x) es mucho mayor que F_B (+x)"]
        L3 --> L4
        L4 --> L5["La fuerza de gradiente transversal neta F_x devuelve la esfera al eje del haz (x = 0)"]
    end

    subgraph Axial["2. Fuerza restauradora axial bajo enfoque de alta apertura numérica (High-NA)"]
        A1["La esfera se desplaza aguas abajo (+z) más allá del foco O"] --> A2["Los rayos exteriores muy divergentes se refractan hacia el eje z al atravesar la esfera"]
        A2 --> A3["Los rayos salientes están más colimados, aumentando el momento axial p_z de la luz (Δp_z > 0)"]
        A3 --> A4["Por conservación del momento, la esfera recibe un retroceso hacia atrás (-z, hacia el foco O)"]
        A4 --> A5["La fuerza de gradiente hacia atrás supera la fuerza de dispersión y asegura la estabilidad 3D"]
    end
- Estabilidad transversal: En un perfil gaussiano $I(r) = I_0 \exp(-2r^2/w_0^2)$, los rayos más cercanos al eje central portan mayor potencia y su retroceso de refracción devuelve siempre la esfera al centro brillante ($x=y=0$).
- Estabilidad axial y necesidad de un objetivo de alta apertura numérica (High-NA): Cuando la esfera se desplaza aguas abajo ($+z$) del foco $O$, refracta hacia adentro los rayos exteriores fuertemente divergentes, incrementando el momento hacia adelante $p_z$ de la luz ($\Delta p_z > 0$) y generando una fuerza de reacción hacia atrás ($-z$) hacia el foco $O$. Para vencer el empuje de las reflexiones superficiales, es indispensable sobrellenar la apertura posterior de un objetivo de inmersión de alta apertura numérica ($\text{NA} = n_m \sin\theta_{\max} \ge 1.2$).
4. Régimen dipolar electromagnético (Dispersión de Rayleigh, $a \ll \lambda$)
Para nanopartículas ($a \ll \lambda$), la esfera actúa como un dipolo eléctrico puntual inducido $\mathbf{p} = \alpha \mathbf{E}$ cuya polarizabilidad de Clausius-Mossotti $\alpha$ escala con el volumen ($\propto a^3$):
$$ \alpha = 4\pi n_m^2 \varepsilon_0 a^3 \left( \frac{m^2 - 1}{m^2 + 2} \right) \qquad \left(m \equiv \frac{n_p}{n_m}\right) $$El promedio temporal de la fuerza de Lorentz y la sección eficaz de dispersión de Rayleigh ($\sigma_{\text{scat}} \propto k^4 a^6$) conducen a la fuerza de gradiente $\mathbf{F}_{\text{grad}}$ y a la fuerza de dispersión $\mathbf{F}_{\text{scat}}$:
$$ \mathbf{F}_{\text{grad}}(\mathbf{r}) = \frac{2\pi n_m a^3}{c} \left( \frac{m^2 - 1}{m^2 + 2} \right) \nabla I(\mathbf{r}) = -\nabla U(\mathbf{r}) $$$$ \mathbf{F}_{\text{scat}}(\mathbf{r}) = \frac{n_m \sigma_{\text{scat}}}{c} I(\mathbf{r})\hat{\mathbf{z}} = \frac{128 \pi^5 n_m^5 a^6}{3 c \lambda_0^4} \left( \frac{m^2 - 1}{m^2 + 2} \right)^2 I(\mathbf{r}) \hat{\mathbf{z}} $$| Propiedad física | Fuerza de gradiente ($\mathbf{F}_{\text{grad}}$) | Fuerza de dispersión ($\mathbf{F}_{\text{scat}}$) |
|---|---|---|
| Origen físico | Campo inhomogéneo sobre dipolo inducido (minimización del potencial $U$) | Transferencia de momento por absorción y reemisión de Rayleigh |
| Dirección de acción | A lo largo del gradiente de intensidad $\nabla I(\mathbf{r})$ (hacia el foco 3D si $n_p > n_m$) | A lo largo del vector de onda $\hat{\mathbf{z}}$ (empuja la partícula aguas abajo) |
| Escalamiento con el radio $a$ ($a \ll \lambda$) | Proporcional al volumen ($\propto a^3$) | Proporcional al cuadrado del volumen ($\propto a^6$) |
| Escalamiento con la longitud de onda $\lambda_0$ | A través de la geometría del punto focal | Inversa de la cuarta potencia ($\propto \lambda_0^{-4}$) |
| Contraste de índice $m = n_p/n_m$ | Lineal en $\left(\frac{m^2-1}{m^2+2}\right)$ (cambia de signo en $m=1$) | Cuadrático $\left(\frac{m^2-1}{m^2+2}\right)^2$ (siempre empuja hacia adelante) |
Para evitar el escape térmico browniano ($k_B T \approx 4.14\,\text{pN}\cdot\text{nm}$ a $T = 300\,\text{K}$), la profundidad del pozo de potencial debe cumplir $|U_{\min}| \propto a^3 I_{\max} \gtrsim 10\,k_B T$. Debido al escalamiento $a^3$, los biofísicos unen químicamente el ADN o las proteínas a microesferas dieléctricas ($2a \sim 0.5\text{–}2\,\mu\text{m}$) que actúan como asas mecánicas.
5. Movimiento browniano, ecuación de Langevin y calibración al piconewton
Cerca del centro de equilibrio ($|\Delta x| \lesssim 150\,\text{nm}$), el pozo de potencial es armónico ($U(x) \approx \frac{1}{2}\kappa_x x^2$) y cumple la ley de Hooke:
$$ F_{\text{trap}}(x) = -\kappa_x \Delta x $$donde $\kappa_x$ ($0.005\text{–}1.0\,\text{pN/nm}$) es la rigidez de la trampa (Trap Stiffness). A bajo número de Reynolds ($\text{Re} \sim 10^{-5} \ll 1$), el término inercial desaparece y la trayectoria $x(t)$ obedece la ecuación de Langevin sobreamortiguada con arrastre viscoso de Stokes $\gamma = 6\pi\eta_{\text{vis}}a$:
$$ \gamma \frac{dx(t)}{dt} + \kappa x(t) = \sqrt{2\gamma k_B T}\,\eta(t) $$
  flowchart TD
    subgraph Detection["Interferometría en el plano focal posterior (BFP)"]
        I1["Láser IR cercano (λ = 1064 nm) enfocado por objetivo de alta NA"] --> I2["Atrapamiento 3D de microesfera (2a = 0.5–2 μm) en cámara acuosa"]
        I2 --> I3["La onda dispersada hacia adelante interfiere con el haz transmitido"]
        I3 --> I4["El condensador proyecta la interferencia sobre un fotodiodo de cuadrante (QPD)"]
        I4 --> I5["Las señales diferenciales entregan la traza x(t) con resolución subnanométrica a 100 kHz"]
    end

    subgraph Calibration["Tres métodos de calibración de la rigidez de la trampa (κ)"]
        I5 --> M1["1. Equipartición: Medir la varianza ⟨x²⟩ y calcular κ = k_B T / ⟨x²⟩"]
        I5 --> M2["2. Densidad espectral de potencia (PSD): Ajuste lorentziano S_xx(f) para extraer f_c = κ / (2πγ)"]
        I5 --> M3["3. Arrastre hidrodinámico de Stokes: Mover platina piezoeléctrica a velocidad v y medir Δx = γ(h)v / κ"]
    end
- Teorema de equipartición: $\frac{1}{2}\kappa \langle x^2 \rangle = \frac{1}{2}k_B T \implies \kappa = k_B T / \langle x^2 \rangle$.
- Densidad espectral de potencia (PSD): El espectro de frecuencias sigue un perfil lorentziano con frecuencia de esquina $f_c$: $$ S_{xx}(f) = \frac{k_B T}{\pi^2 \gamma \left( f_c^2 + f^2 \right)}, \qquad f_c = \frac{\kappa}{2\pi \gamma} $$
- Arrastre hidrodinámico de Stokes (con corrección de pared de Faxén): $F = \gamma_\parallel(h)v = \kappa \Delta x$.
6. La revolución de la biofísica de moléculas individuales: Elasticidad del ADN y motores moleculares
El uso de la ventana óptica biológica en el infrarrojo cercano ($\lambda = 1064\,\text{nm}$) junto con sistemas enzimáticos captadores de oxígeno previene el fotodaño celular.
Carlos Bustamante y la elasticidad entrópica de moléculas individuales de ADN
Entre 1992 y 1996, Carlos Bustamante y colaboradores midieron la curva fuerza-extensión $F(z)$ de una molécula individual de ADN de doble cadena del fago $\lambda$ ($L_0 \approx 16.5\,\mu\text{m}$), demostrando que sigue el modelo de cadena tipo gusano (Worm-Like Chain, WLC) (Marko & Siggia, 1995) con longitud de persistencia $L_p \approx 50\,\text{nm}$:
$$ F(z) = \frac{k_B T}{L_p} \left[ \frac{1}{4\left(1 - z/L_0\right)^2} - \frac{1}{4} + \frac{z}{L_0} \right] $$y descubriendo a $F \approx 65\,\text{pN}$ la transición de sobreestiramiento (Overstretching Transition) hasta $1.7$ veces su longitud original.
Steven Block: Los pasos de 8 nm de la kinesina y la resolución de pares de bases de la ARN polimerasa
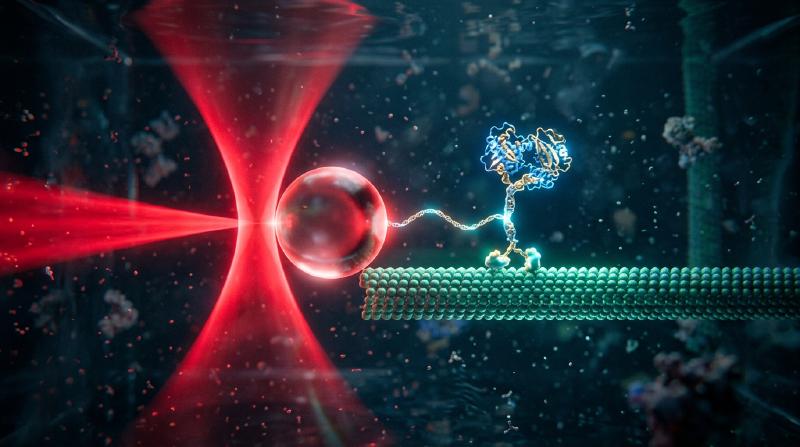
- Kinesina-1: En 1993, el grupo de Steven Block (Nature, 365, 721) demostró que una sola molécula de kinesina camina sobre un microtúbulo dando pasos discretos de $\Delta d = 8.2\,\text{nm}$, hidrolizando exactamente 1 molécula de ATP por paso contra una fuerza de detención (Stall Force) de $F_{\text{stall}} \approx 6\text{–}7\,\text{pN}$ ($\sim 50\text{–}60\%$ de eficiencia termodinámica).
- Pinzas ópticas de doble trampa y ARN polimerasa (RNAP): En 2005, mediante una doble trampa óptica pasiva aislada en helio, el equipo de Block resolvió los pasos individuales de $3.4\,\text{\AA}$ ($0.34\,\text{nm}$, un solo par de bases) de la ARN polimerasa transcribiendo ADN.
7. Fronteras modernas: Pinzas holográficas, plasmónica y optomecánica cuántica
- Pinzas ópticas holográficas (HOT) y llaves ópticas: Moduladores espaciales de luz (SLM) controlan cientos de trampas simultáneamente, mientras el momento angular de espín ($\pm\hbar$) u orbital ($\ell\hbar$ en haces vórtice de Laguerre-Gauss) hace girar microrrotores.
- Nanopinzas plasmónicas: Las resonancias de plasmón superficial localizado (LSPR) en nanoantenas metálicas atrapan directamente proteínas individuales ($< 10\,\text{nm}$).
- Matrices de átomos neutros y optomecánica cuántica en vacío: Las matrices de pinzas ópticas impulsan los simuladores cuánticos de átomos neutros y el enfriamiento en ultra-alto vacío de nanoesferas de sílice hasta su estado fundamental cuántico de movimiento ($\bar{n} < 1$ fonón) (Delić et al., Science, 2020).