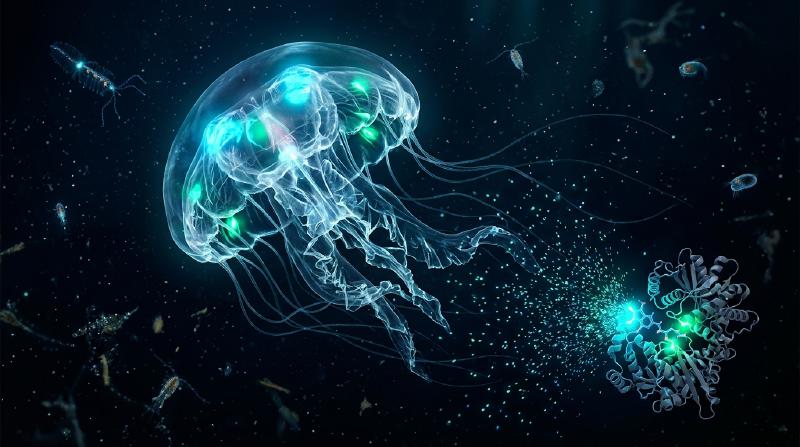
En una cálida noche de verano, miles de luciérnagas (Photinus pyralis, Luciola cruciata) flotan en la oscuridad como brasas esmeralda. A $1.000\,\text{m}$ bajo la superficie del océano —en las zonas mesopelágica y batipelágica donde no penetra ni un solo fotón solar— más del $75\%$ de los organismos pelágicos, desde el calamar vampiro (Vampyroteuthis infernalis) y los peces linterna (Myctophidae) hasta los peces abisales y la medusa cristal (Aequorea victoria), iluminan el abismo con destellos azules y verdes.
Las fuentes de luz tradicionales, como la llama de una vela ($\sim 1.700\,\text{K}$) o el filamento de tungsteno de una bombilla incandescente ($\sim 2.800\,\text{K}$), requieren temperaturas extremas para emitir luz visible, desperdiciando más del $90\%$ de su energía como calor infrarrojo. Sin embargo, si sostienes una luciérnaga en la palma de la mano, su abdomen se siente completamente frío, a temperatura ambiente ($T \approx 295\text{–}300\,\text{K}$, o $22\text{–}27\,^\circ\text{C}$). De hecho, las proteínas y enzimas sufren una desnaturalización térmica irreversible por encima de $315\text{–}323\,\text{K}$ ($42\text{–}50\,^\circ\text{C}$).
¿Cómo logra la vida sortear las leyes de la radiación térmica para convertir la energía de enlace químico directamente en estados electrónicos excitados singulete ($S_1^*$) a $300\,\text{K}$, emitiendo «luz fría» (Cold Light) con un rendimiento cuántico de hasta el $41\%\text{–}88\%$?
Capítulo 1: Radiación térmica (Incandescencia) vs. Luminiscencia
1.1 El abismo energético entre un fotón visible y la energía térmica ($k_B T$)
En el espectro visible ($\lambda = 400\text{–}700\,\text{nm}$), la energía de un fotón y su equivalente molar vienen dados por:
$$E_{\text{photon}} = h\nu = \frac{hc}{\lambda} \approx \frac{1239,8\,\text{eV}\cdot\text{nm}}{\lambda(\text{nm})}$$- Luz verde-amarilla de la luciérnaga ($\lambda \approx 560\,\text{nm}$): $E_{\text{photon}} \approx 2,21\,\text{eV}$, $E_{\text{mol}} = N_A h\nu \approx 213,6\,\text{kJ/mol}$.
- Luz azul abisal ($\lambda \approx 470\,\text{nm}$): $E_{\text{photon}} \approx 2,64\,\text{eV}$, $E_{\text{mol}} \approx 254,5\,\text{kJ/mol}$.
En cambio, la energía térmica media $k_B T$ a temperatura ambiente ($T = 300\,\text{K}$) es tan solo:
$$k_B T \big|_{T=300\,\text{K}} \approx 0,02585\,\text{eV}, \qquad RT \big|_{T=300\,\text{K}} \approx 2,494\,\text{kJ/mol}$$¡Generar un solo fotón visible requiere casi 100 veces el cuanto de energía térmica media a temperatura ambiente! En equilibrio térmico a $300\,\text{K}$, la probabilidad de Boltzmann de poblar espontáneamente un estado excitado a $\Delta E = 2,21\,\text{eV}$ es $\exp(-\Delta E / k_B T) = \exp(-85,5) \approx 7,4 \times 10^{-38}$ — físicamente cero.
1.2 Ley de Planck y ley de desplazamiento de Wien
La radiancia espectral $B_\lambda(\lambda, T)$ de un cuerpo negro sigue la ley de Planck, su pico de emisión la ley de Wien y su emitancia total la ley de Stefan-Boltzmann:
$$B_\lambda(\lambda, T) = \frac{2hc^2}{\lambda^5} \frac{1}{\exp\left(\dfrac{hc}{\lambda k_B T}\right) - 1}, \qquad \lambda_{\max} \cdot T = 2,8978 \times 10^{-3}\,\text{m}\cdot\text{K}, \qquad J = \sigma T^4$$A $T = 300\,\text{K}$, el pico se sitúa en el infrarrojo medio ($\lambda_{\max} \approx 9,66\,\mu\text{m}$). Incluso en un filamento de tungsteno a $2.800\,\text{K}$, el pico permanece en el infrarrojo cercano ($\lambda_{\max} \approx 1.035\,\text{nm}$), perdiendo $>90\%$ de la electricidad en calor. Solo la fotosfera solar ($T \approx 5.778\,\text{K}$) alcanza $\lambda_{\max} \approx 501\,\text{nm}$.
1.3 Luminiscencia («Luz fría»): excitación cuántica selectiva fuera del equilibrio
Acuñado en 1888 por Eilhardt Wiedemann, el término luminiscencia describe toda emisión de luz no térmica donde se inyectan $2\text{–}3\,\text{eV}$ selectivamente en una transición electrónica ($\text{HOMO} \to \text{LUMO}$, $S_0 \to S_1^*$) manteniendo el medio a $300\,\text{K}$.
| Categoría de emisión | Fuente de excitación | Mecanismo físico-químico | Ejemplos representativos | Temperatura |
|---|---|---|---|---|
| Incandescencia (Cuerpo negro) | Agitación térmica ($k_B T$) | Población térmica indiscriminada de todos los modos | Sol, llama de vela, bombilla de filamento | $1.500\text{–}6.000\,\text{K}$ |
| Fluorescencia (Fotoluminiscencia) | Absorción de fotón externo ($h\nu_{\text{ex}}$) | Decaimiento permitido por espín $S_1 \to S_0$ ($\tau \sim 10^{-9}\,\text{s}$) | GFP (Aequorea), pigmentos de coral, rotuladores | Ambiente ($\sim 300\,\text{K}$) |
| Fosforescencia | Absorción fotónica + Cruce intersistema (ISC) | Transición prohibida por espín $T_1 \to S_0$ ($\Delta S = 1, \tau \sim 10^{-3}\text{–}10^4\,\text{s}$) | Pinturas luminiscentes ($\text{SrAl}_2\text{O}_4:\text{Eu}^{2+}$) | Ambiente ($\sim 300\,\text{K}$) |
| Electroluminiscencia | Campo eléctrico / inyección de portadores | Recombinación radiativa electrón-hueco | LEDs azules/blancos ($\text{InGaN}$), pantallas OLED | Ambiente |
| Quimioluminiscencia | Reordenamiento químico exotérmico | Ruptura de peróxido que puebla directamente $S_1^*$ | Luminol forense, barras luminosas (oxalato) | Ambiente |
| Bioluminiscencia | Quimioluminiscencia catalizada por enzimas | Oxidación de luciferina por luciferasa vía 1,2-dioxetanona | Luciérnagas, Vargula, dinoflagelados, Vibrio, hongos | Fisiológica ($275\text{–}310\,\text{K}$) |
Capítulo 2: Bioluminiscencia vs. Fluorescencia (GFP) vs. Fosforescencia y BRET
Es fundamental distinguir entre bioluminiscencia y biofluorescencia (como la GFP):
- La fluorescencia (ej. GFP) es un proceso fotofísico que requiere obligatoriamente luz de excitación externa ($h\nu_{\text{ex}}$, UV o azul). Tras absorber el fotón ($10^{-15}\,\text{s}$) y perder parte de la energía por relajación vibracional ($10^{-12}\,\text{s}$), emite en nanosegundos ($\tau \approx 10^{-9}\,\text{s}$) un fotón de mayor longitud de onda (desplazamiento de Stokes, $\lambda_{\text{em}} > \lambda_{\text{ex}}$). ¡En total oscuridad sin lámpara externa, un organismo fluorescente no brilla en absoluto!
- La fosforescencia implica un cruce intersistema (ISC) desde el estado singulete $S_1$ ($\uparrow\downarrow, S=0$) al estado triplete $T_1$ ($\uparrow\uparrow, S=1$), cuya emisión $T_1 \to S_0$ está prohibida por espín ($\Delta S = 1$), prolongando el resplandor de milisegundos a horas.
- La bioluminiscencia es un proceso fotoquímico (quimioexcitación) que opera en oscuridad absoluta sin luz externa: la oxidación catalítica de la luciferina por la luciferasa cruza directamente a la superficie excitada $\text{Oxiluciferina}^*(S_1)$.
  flowchart TD
    subgraph INC ["1. Incandescencia (Radiación térmica de cuerpo negro)"]
        T1["Calentamiento extremo (T > 2.500 K)<br/>Agitación térmica indiscriminada de todos los modos"] --> T2["Espectro continuo de Planck B_λ(T)<br/>(>90% perdido como calor IR; letal para proteínas)"]
    end

    subgraph FL ["2. Fotoluminiscencia: Fluorescencia (GFP) y Fosforescencia"]
        F1["Absorción de fotón externo (hν_ex: UV / Azul)<br/>Estado fundamental S0 → Singulete excitado S1 (10^-15 s)"] --> F2["Relajación vibracional (10^-12 s)<br/>Desplazamiento de Stokes (λ_em > λ_ex)"]
        F2 --> F3["Fluorescencia permitida S1 → S0 + hν_em (10^-9 s)<br/>*¡Totalmente oscuro sin luz externa!*"]
        F2 -.->|"Cruce intersistema (ISC: ΔS = 1)"| F4["Fosforescencia prohibida T1 → S0 + hν_ph<br/>(Persistencia de 10^-3 s a horas)"]
    end

    subgraph BL ["3. Bioluminiscencia ('Luz fría' a 300 K)"]
        B1["Luciferina + O2 (+ ATP o Ca2+)<br/>Unida al sitio activo de la luciferasa a 300 K"] --> B2["Anillo peróxido de cuatro miembros tenso<br/>(Intermediario 1,2-dioxetanona)"]
        B2 --> B3["Ruptura concertada CIEEL y Quimioexcitación (-CO2)<br/>Cruce directo de superficies S0 → S1*"]
        B3 --> B4["Oxiluciferina*(S1) → Oxiluciferina(S0) + hν<br/>(Cero luz externa requerida; Φ_BL de 41 a 88%)"]
    end

    subgraph BRET_BOX ["4. Transferencia de energía por resonancia de bioluminiscencia (BRET en Aequorea victoria)"]
        BR1["Aequorina (Coelenterazina + Ca2+)<br/>La quimioexcitación crea el donador azul S1* (470 nm)"] -->|"Acoplamiento dipolo-dipolo de Förster (r < 5 nm)<br/>Transferencia no radiativa E = 1/(1+(r/R0)^6)"| BR2["Excita el cromóforo de la GFP (Ser65-Tyr66-Gly67)<br/>Emite fotón verde (λ = 509 nm)"]
    end
2.2 Osamu Shimomura (Premio Nobel 2008) y el acoplamiento BRET entre Aequorina y GFP
Al investigar la medusa Aequorea victoria (que brilla en verde a $509\,\text{nm}$), Osamu Shimomura descubrió que la fotoproteína purificada Aequorina (con coelenterazina y activada por $\text{Ca}^{2+}$) emite luz azul ($\lambda_{\max} = 470\,\text{nm}$) en tubo de ensayo. En el órgano luminoso de la medusa, la Aequorina transfiere su energía de excitación de forma no radiativa a una distancia $r \approx 2\text{–}5\,\text{nm}$ hacia la proteína verde fluorescente (GFP) mediante BRET (Bioluminescence Resonance Energy Transfer) por acoplamiento dipolo-dipolo de Förster:
$$E_{\text{BRET}} = \frac{1}{1 + \left(\dfrac{r}{R_0}\right)^6}, \qquad R_0^6 \propto \kappa^2 \, \Phi_D \, n^{-4} \int_0^\infty F_D(\lambda)\, \varepsilon_A(\lambda)\, \lambda^4 \, d\lambda$$Capítulo 3: Química cuántica de la reacción Luciferina–Luciferasa de la luciérnaga
La reacción en los peroxisomas de las células fotócitas de Photinus pyralis o Luciola emplea D-luciferina, la enzima luciferasa ($61\,\text{kDa}$), $\text{ATP}$, $\text{Mg}^{2+}$ y $\text{O}_2$ en cuatro etapas:
- Paso 1: Adenilación (Activación del sustrato) — Desmitificando el papel del ATP $$\text{D-Luciferina} + \text{ATP} \xrightarrow{\text{Luciferasa, Mg}^{2+}} \text{E}\cdot\text{D-Luciferil-AMP} + \text{PP}_i$$ Aclaración termodinámica clave: La hidrólisis del ATP ($\Delta G^{\circ\prime} \approx -30,5\,\text{kJ/mol}$) no aporta los $214\,\text{kJ/mol}$ de un fotón de $560\,\text{nm}$. El ATP actúa como activador cinético: convierte el grupo $-\text{COO}^-$ en el éster acil-adenilato ($-\text{CO-AMP}$), reduciendo drásticamente el $pK_a$ del protón C4 para formar un carbanión e instalando un excelente grupo saliente ($-\text{AMP}$).
- Paso 2: Transferencia monoelectrónica (SET), oxigenación y ciclación a 1,2-dioxetanona El carbanión C4 reacciona con el oxígeno triplete ($^3\text{O}_2$) vía SET formando un hidroperóxido que expulsa $\text{AMP}$ por sustitución nucleofílica intramolecular, cerrando un anillo peróxido de cuatro miembros altamente tenso: la 1,2-dioxetanona ($\alpha$-peroxilactona).
- Paso 3: Mecanismo CIEEL / CTIL e intersección cónica $S_0/S_1$ La descomposición de la 1,2-dioxetanona en oxiluciferina y $\text{CO}_2$ libera $\Delta H \approx -280\text{ a }-320\,\text{kJ/mol}$ al aliviar la tensión del anillo ($\sim 110\,\text{kJ/mol}$), romper el débil enlace $\text{O}-\text{O}$ ($\sim 140\,\text{kJ/mol}$) y formar los dos enlaces dobles ultraestables $\text{C}=\text{O}$ del $\text{CO}_2$. Según las reglas de simetría orbital de Woodward–Hoffmann y el mecanismo CIEEL / CTIL, el fenolato desprotonado ($-\text{O}^-$) transfiere densidad electrónica al orbital antienlazante $\sigma^*(\text{O}-\text{O})$. Como la ruptura concertada en el estado fundamental $S_0$ está prohibida por simetría orbital, la superficie $S_0$ sube abruptamente y cruza la superficie excitada singulete $S_1$ en una intersección cónica (Conical Intersection). Al salir el $\text{CO}_2$, la retrodonación electrónica puebla directamente el $\text{LUMO}(\pi^*)$, generando $\text{Oxiluciferina}^*(S_1)$ a $300\,\text{K}$.
- Paso 4: Emisión de fotones, rendimiento cuántico ($\Phi_{\text{BL}}$) y sintonización del color $$\text{Oxiluciferina}^*(S_1) \longrightarrow \text{Oxiluciferina}(S_0) + h\nu \quad (\lambda_{\max} \approx 560\,\text{nm}), \qquad \Phi_{\text{BL}} = \Phi_{\text{chem}} \times \Phi_{\text{ex}} \times \Phi_{\text{fl}}$$ Mediciones absolutas con esfera integradora determinaron $\Phi_{\text{BL}} = 41,0 \pm 7,4\%$ a pH 8,5 (Ando et al., 2008, Nature Photonics). Sintonización del color ($538\,\text{nm}$ verde a $622\,\text{nm}$ rojo): Nakatsu et al. (2006, Nature) demostraron que el residuo Ile288 actúa como una compuerta hidrofóbica rígida que impide la torsión TICT y la entrada de agua para emitir luz verde-amarilla ($560\,\text{nm}$), mientras que a pH ácido (6,0) o en mutantes la cavidad se relaja, estabilizando el estado $S_1^*$ y desplazando la emisión al rojo ($615\,\text{nm}$, desplazamiento batocrómico).
  flowchart TD
    S1["<b>Paso 1: Adenilación (Activación del sustrato)</b><br/>D-Luciferina + ATP + Mg2+ → D-Luciferil-AMP + PPi<br/>(Reduce el pKa de C4-H e instala el grupo saliente -AMP)"]
    S2["<b>Paso 2: Oxigenación y Ciclación Peróxido</b><br/>Carbanión C4 + O2 (SET) → Hidroperóxido<br/>→ Ataque intramolecular (-AMP) → <b>Anillo 1,2-Dioxetanona</b>"]
    S3["<b>Paso 3: Quimioexcitación CIEEL / CTIL</b><br/>El fenolato (-O-) dona un electrón a σ*(O-O)<br/>→ Ruptura concertada (-CO2, ΔH ≈ -300 kJ/mol)<br/>→ Intersección cónica S0/S1 → <b>Oxiluciferina*(S1, π*)</b>"]
    S4["<b>Paso 4: Decaimiento Radiativo y Color</b><br/>Oxiluciferina*(S1) → Oxiluciferina(S0) + hν (Φ_BL ≈ 41–88%)"]

    C1["<b>Emisión Verde-Amarilla (λ ≈ 550–560 nm, pH 8,0)</b><br/>Cavidad hidrofóbica rígida cerrada (compuerta Ile288)<br/>Suprime torsión TICT y relajación polar → Alto ΔE"]
    C2["<b>Emisión Roja (λ ≈ 615–622 nm, pH 6,0 / Mutantes)</b><br/>Bolsillo flexible permite entrada de agua y relajación<br/>Estabiliza el estado S1* → Desplazamiento batocrómico"]

    S1 --> S2 --> S3 --> S4
    S4 --> C1
    S4 --> C2
Capítulo 4: Evolución convergente (40–90+ orígenes) y ecología de aguas profundas
La bioluminiscencia evolucionó de forma independiente entre 40 y más de 90 veces (Haddock et al., 2010) a partir de pigmentos antioxidantes detoxificadores de especies reactivas de oxígeno (ROS):
- Sistemas marinos de coelenterazina y vargulina (Cypridina): Más del $75\%$ de los organismos mesopelágicos brillan. La coelenterazina se emplea en más de nueve filos animales (a menudo adquirida en la dieta) y emite luz azul ($\lambda_{\max} = 450\text{–}490\,\text{nm}$), coincidiendo con la ventana de máxima transmisión óptica del agua de mar. El ostrácodo Vargula hilgendorfii expulsa nubes luminosas azules ($462\,\text{nm}$) usando vargulina.
- Dinoflagelados (Noctiluca) y canales de protones dependientes de voltaje ($\text{H}_v1$): El esfuerzo cortante hidrodinámico de las olas despolariza la membrana vacuolar y abre los canales $\text{H}_v1$, reduciendo el pH de los scintillones de $8,0$ a $6,0$ en milisegundos y disparando un destello azul de $100\,\text{ms}$ ($475\,\text{nm}$) como «alarma antirrobo» (Burglar Alarm).
- Operón bacteriano
luxCDABEGy percepción de quórum (Quorum Sensing): Las bacterias simbióticas Aliivibrio fischeri (en el calamar Euprymna scolopes) oxidan $\text{FMNH}_2$ y un aldehído de cadena larga ($\text{RCHO}$) a $490\,\text{nm}$ solo cuando el autoinductor AHL supera un umbral de alta densidad celular ($>10^{10}\,\text{células/mL}$). - Ciclo fúngico del ácido cafeico (Mycena, Neonothopanus): Cuatro enzimas (
HispS,H3H,Luz,CPH) convierten el ácido cafeico en 3-hidroxihispidina, que emite luz verde ($520\text{–}530\,\text{nm}$) y se recicla de nuevo a ácido cafeico (Kotlobay et al., 2018, PNAS). - Contrailuminación y reflectores rojos furtivos (Malacosteus niger): Los peces linterna borran su silueta ventral mediante contrailuminación azul ($475\,\text{nm}$), mientras que el pez dragón Malacosteus niger emite luz rojo lejano/infrarrojo cercano ($>700\,\text{nm}$) acoplada a un fotosensibilizador derivado de clorofila para cazar presas rojas sin ser detectado.
Capítulo 5: Imagen médica (AkaBLI), higiene por ATP y plantas autoluminiscentes
- Imagen por bioluminiscencia in vivo (BLI) y el sistema infrarrojo cercano AkaBLI: Sin ruido de autofluorescencia, la BLI alcanzó un hito cuando Iwano & Miyawaki et al. (2018, Science, RIKEN) diseñaron el par AkaLumine-HCl / AkaLuc ($\lambda_{\max} = 677\,\text{nm}$ en la ventana biológica infrarroja), aumentando 1.000 veces la sensibilidad profunda y logrando visualizar una sola célula cancerosa metastásica en los pulmones de un ratón vivo.
- NanoLuc y luminómetros de higiene por ATP: La luciferasa NanoLuc ($19\,\text{kDa}$) del camarón abisal Oplophorus brilla $150\times$ más que la de luciérnaga; los luminómetros de ATP cuantifican $10^{-15}\text{–}10^{-18}\,\text{mol}$ de ATP microbiano en 10 segundos para control quirúrgico, alimentario y espacial.
- Plantas autoluminiscentes (Firefly Petunia): Al transferir los cuatro genes del ciclo fúngico del ácido cafeico (precursor universal de la lignina vegetal) al tabaco y la petunia (Mitiouchkina et al., 2020, Nature Biotechnology), se crearon plantas que brillan con luz verde visible a simple vista durante toda su vida sin sustratos externos.