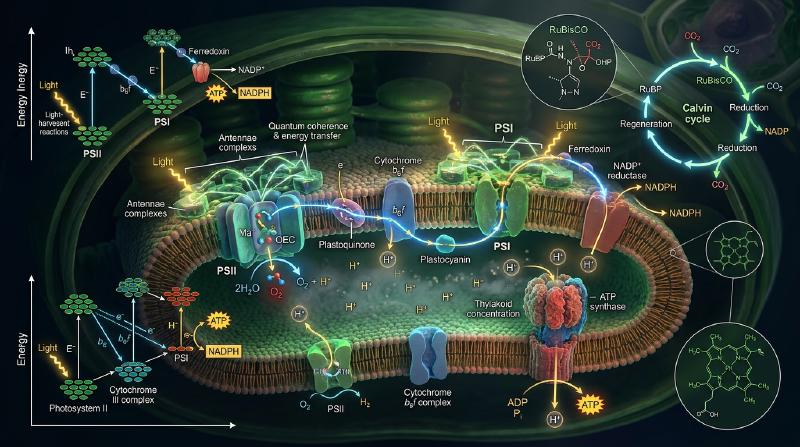
Einleitung: Das größte thermodynamische Kraftwerk der Biosphäre
Das Leben auf der Erde wird durch einen einzigen molekularen Prozess angetrieben: die Photosynthese.
Jedes Jahr fangen Pflanzen, Algen und Cyanobakterien solare Energie auf, um über 100 Milliarden Tonnen anorganisches $\text{CO}_2$ in Biomasse zu binden und zeitgleich 100 Milliarden Tonnen reinen Sauerstoff ($\text{O}_2$) freizusetzen. Die biologische Gesamtleistung beträgt rund 100 Terawatt ($100\text{ TW}$) – ein Vielfaches des menschlichen Primärenergiebedarfs.
  flowchart LR
    subgraph PhotosynthesisMacro["Die zwei Hauptphasen der Photosynthese"]
        direction LR
        subgraph LightReaction["Lichtreaktion (Thylakoidmembran)"]
            Sun["Sonnenlicht (hν)"] --> PSII["Fotosystem II (Wasserspaltung)"]
            H2O["Wasser (2H2O)"] --> PSII
            PSII -->|O2-Freisetzung| O2["Sauerstoff (O2)"]
            PSII -->|Elektronentransportkette| Cyt["Cytochrom b6f & PSI"]
            Cyt -->|Protonengradient| ATP_Syn["ATP-Synthase"]
            ATP_Syn --> ATP["Chemische Energie: ATP"]
            Cyt --> NADPH["Reduktionsäquivalent: NADPH"]
        end

        subgraph DarkReaction["Calvin-Zyklus (Stroma)"]
            CO2["Atmosphärisches CO2"] --> RuBisCO["RuBisCO-Fixierung"]
            ATP -.->|Energieübertragung| RuBisCO
            NADPH -.->|Elektronenübertragung| RuBisCO
            RuBisCO --> Sugar["Kohlenhydrate (G3P)"]
        end
    end
Während Silizium-Solarzellen unter Laborbedingungen 20% Wirkungsgrad erreichen, arbeitet der Exzitonentransfer in Lichtsammelantennen mit einer Quantenausbeute von nahezu 100% – und das bei Raumtemperatur und neutralem pH-Wert.
1. Supramolekulare Struktur der Thylakoidmembran
Die enorme Effizienz der Photosynthese beruht auf der räumlichen Trennung der Proteinkomplexe in der Thylakoidmembran:
- Fotosystem II (PSII): Nahezu ausschließlich in den dicht gestapelten Granamembranen lokalisiert.
- Fotosystem I (PSI): In den ungestapelten Stromalamellen positioniert, um unkontrollierte Energieabflüsse (Spillover) von PSII zu verhindern.
- Cytochrom-$b_6f$-Komplex: Gleichmäßig verteilt zur Vermittlung des Elektronentransports.
- $F_oF_1$-ATP-Synthase: Auf Stromalamellen beschränkt, da der voluminöse $F_1$-Kopf sterisch nicht in die Grana-Spalten passt.
2. Quantenbiologie: Exzitonentransfer und Quantenkohärenz
  flowchart TD
    subgraph ExcitonTransfer["Exzitonen-Migration"]
        Photon["Absorption (hν)"] --> LHC["Lichtsammelkomplex (LHCII)"]
        LHC --> Exciton["Delokalisiertes Frenkel-Exziton"]
        Exciton --> FRET["Klassischer FRET (R⁻⁶-Abhängigkeit)"]
        Exciton --> Coherence["Quantenkohärenz (Wellenüberlagerung)"]
        Coherence --> RC["Ultraschnelle Falle: P680 / P700"]
    end
Mittels zweidimensionaler elektronischer Spektroskopie wurde nachgewiesen, dass angeregte Zustände nicht als klassische Partikel von Chlorophyll zu Chlorophyll springen, sondern als quantenkohärente Exzitonenwellen agieren. Das Exziton erkundet simultan mehrere Pfade und wird durch Gitterschwingungen des Proteins (ENAQT) verlustfrei in weniger als $50\text{ ps}$ zum Reaktionszentrum geleitet.
3. Die Lichtreaktion: Z-Schema und Wasserspaltung
  flowchart TD
    subgraph ZScheme["Das Z-Schema der Photosynthese"]
        direction TB
        P680["P680 Grundzustand (+1,25 V stärkstes biologisches Oxidationsmittel)"]
        P680_star["P680* angeregt (-0,8 V)"]
        Pheo["Phäophytin (-0,6 V)"]
        PQ["Plastochinon-Pool"]
        Cytb6f["Cytochrom b6f (Q-Zyklus)"]
        PC["Plastocyanin (+0,37 V)"]
        P700["P700 Grundzustand (+0,45 V)"]
        P700_star["P700* angeregt (-1,2 V)"]
        Fd["Ferredoxin (-0,43 V)"]
        NADPH["NADPH-Bildung (-0,32 V)"]

        P680 -->|hν 680nm| P680_star --> Pheo --> PQ --> Cytb6f --> PC --> P700
        P700 -->|hν 700nm| P700_star --> Fd --> NADPH
    end
- P680-Radikalkation: Mit einem Redoxpotenzial von $+1,25\text{ V}$ entreißt es Wassermolekülen die Elektronen.
- Sauerstoffentwickelnder Komplex (OEC): Enthält den $\text{Mn}_4\text{CaO}_5$-Cluster in verzerrter Sesselkonformation. Nach Kok’s S-Zustandsuhr ($S_0 \rightarrow S_4$) sammelt der Komplex 4 Oxidationsäquivalente an, um zwei Wassermoleküle synchron ohne toxische Radikale zu spalten:
4. Protonenmotorische Kraft und die rotierende ATP-Synthase
Durch Protonenakkumulation sinkt der pH-Wert im Lumen auf $\approx 5,5$, während das Stroma basisch bleibt ($\text{pH} \approx 8,0$). Die protonenmotorische Kraft beträgt:
$$\Delta p = \Delta\Psi - \frac{2,303 R T}{F} \Delta\text{pH} \approx 200\text{ mV}$$Beim Rückstrom durch die $F_oF_1$-ATP-Synthase dreht sich der $c$-Ring des $F_o$-Motors im Uhrzeigersinn. Die exzentrische $\gamma$-Achse treibt strukturelle Konformationsänderungen (Open, Loose, Tight) der $\alpha_3\beta_3$-Untereinheiten an und erzeugt 3 ATP pro $360^\circ$-Drehung mit über 90% Energieausbeute.
5. Calvin-Benson-Zyklus und das RuBisCO-Dilemma
  flowchart TD
    subgraph CalvinCycle["Die 3 Phasen des Calvin-Zyklus"]
        S1["Phase 1: Carboxylierung (RuBisCO: CO2 + RuBP -> 2 × 3-PGA)"]
        S2["Phase 2: Reduktion (6 ATP + 6 NADPH -> 6 G3P)"]
        S3["Phase 3: Regeneration von RuBP (5 G3P + 3 ATP -> 3 RuBP)"]

        S1 --> S2 --> S3 --> S1
        S2 --> Out["Nettoausbeute: 1 G3P für Glukose"]
    end
Die Sauerstoff-Fehlreaktion von RuBisCO
RuBisCO entwickelte sich vor über 3 Milliarden Jahren in einer anoxischen Ur-Atmosphäre. In unserer heutigen Atmosphäre fixiert RuBisCO bei jedem vierten Reaktionszyklus fälschlicherweise $\text{O}_2$ statt $\text{CO}_2$. Die anschließende Photorespiration verschlingt erhebliche ATP-Mengen und setzt bis zu 40% des gebundenen Kohlenstoffs wieder frei!
Anpassung der C4- und CAM-Pflanzen
- C4-Pflanzen (Mais, Zuckerrohr): Räumliche Trennung. Die primäre Fixierung erfolgt in Mesophyllzellen über PEP-Carboxylase; das $\text{CO}_2$ wird in Bündelscheidenzellen um RuBisCO hochkonzentriert, was Photorespiration eliminiert.
- CAM-Pflanzen (Kakteen, Ananas): Zeitliche Trennung. Spaltöffnungen öffnen sich nur nachts zur Speicherung von Äpfelsäure; tagsüber bleibt die Pflanze geschlossen gegen Austrocknung.
Fazit
Jedes grüne Blatt ist ein lebendes Quanten-Kraftwerk. Die Photosynthese verbindet atomare Koordinationschemie, Quantenoptik und Nanomechanik zu der fundamentalen Lebensgrundlage unseres Planeten.